
ARN lung necodificator KCNQ1OT1 reglează protein kinaza CK2 prin MiR-760 în senescență și restricție calorică
May 08, 2023
Cuvinte cheie:KCNQ1OT1; ARN lung necodant; senescență;restricție calorică; protein kinaza CK2;miR-760
Faceți clic aici pentru a obține mai multe informații despre efectele anti-îmbătrânire ale Cistanche
1. Introducere
ARN-urile lungi necodificatoare (lncRNAs) sunt transcrieri cu o dimensiune mai mare de 200 de nucleotide care nu sunt traduse în proteine. LncRNA-urile sunt responsabile pentru diverse funcții, inclusiv reglarea transcripțională încissautrans, organizarea domeniilor nucleare și interacțiunea cu microARN (miARN) [1–3]. În special, înțelegerea rețelei de interacțiune a lncRNA-urilor și miARN-urilor oferă o nouă perspectivă asupra mecanismelor de reglare ale genelor. ARNlncKCNQ1OT1, al cărui nume complet esteKCNQ1transcript suprapus 1, este un transcript de 91 kb care este transcris de ARN polimeraza II într-o orientare antisens, în raport cuKCNQ1[4,5]. KCNQ1OT1este prezent în intronul 10 al genei KCNQ1. TheKCNQ1locusul este situat pe brațul scurt al cromozomului 11 uman (11p15.5). Prin recrutarea G9a și a histonei metiltransferazei H3K27 PRC2 (complex represiv policomb 2),KCNQ1OT1interacționează cu cromatina pentru a forma o structură complexă de pliere și apoi reduce la tăcere mai multe gene țintă.6]. În plus,KCNQ1OT1este implicat în mai multe afecțiuni, inclusiv boli de inimă, accident vascular cerebral ischemic, ateroscleroză, piroptoză și diferite tipuri de cancer (gastric, ovarian și colorectal) prin legarea la diferite miARN (de exemplu, miR-760, miR{{1} }a, miR-452-3p, miR-320a, miR-701-3p și miR-2054), toate acestea reglează expresia genelor lor țintă [7–13]. Cu toate acestea, rolurile biologice aleKCNQ1OT1în senescență și restricția calorică (CR) rămân neclare.
Senescența celulară este oprirea terminală a proliferării, stimulată de mai multe stresuri celulare, cum ar fi scurtarea telomerilor, activarea oncogenă și stresul oxidativ.14,15]. Studiile anterioare au identificat protein kinaza CK2 (CK2), compusă din două catalitice ( și/sau 0 ) subunități și două de reglementare subunități, ca regulator de senescență. CK2inhibiția declanșează expresia mai multor markeri de senescență, inclusiv cei asociați cu senescența -galactozidaza (SA- -gal) activitate [16], p53–p21Cip1/WAF1activarea axei [17], producția de specii reactive de oxigen (ROS) [18], formarea focarelor heterocromatine asociate senescenței (SAHF) [19] și expresia fenotipului secretor asociat senescenței (SASP) [20]. miR-186, miR-216b, miR-337-3p și miR-760 promovează senescența celulară prin inhibarea CK2 [21,22]. Restricția calorică (CR), constând într-o reducere cronică a aportului total de calorii fără malnutriție, este cea mai de succes strategie de a întârzia senescența celulară.23]. S-a raportat recent că CK2 este suprareglat de CR și induce autofagie [24]. Cu toate acestea, mecanismul molecular care stă la baza reglării CK2 mediată de CR rămâne neclar.
În acest studiu, rolul potențial alKCNQ1OT1în senescenţă şi s-a evaluat CR.KCNQ1OT1knockdown a promovat un fenotip de senescență prin reglarea în jos a CK2 în celulele MCF-7 și HCT116 de cancer uman și în celulele IMR-90 fibroblaste pulmonare. Această cercetare indică faptul căKCNQ1OT1reglează CK2 expresie prin interacțiunea cu miR-760 în timpul senescenței și CR, sugerând căKCNQ1OT1poate fi o nouă țintă terapeutică pentru bolile asociate îmbătrânirii.
2. Rezultate
2.1. KCNQ1OT1 Activarea indusă de deprimare a SA- -gal Colorare, p53-p21Cip1/WAF1Calea și trimetilarea H3K9 prin CK2 Tăcere în celulele canceroase umane
Celulele MCF-7 și HCT116 au fost transfectate cuKCNQ1OT1siRNA pentru a investiga implicareaKCNQ1OT1în senescenţă.KCNQ1OT1Knockdown upregulated SA- -activitatea galului (Figura1A). În plus, rezultatele imunoblot au indicat acest lucruKCNQ1OT1 doborarea suprareglat nivelurile de p53 și p21Cip1/WAF1și semnele distinctive ale SAHF (trimetilarea H3K9 crescută (H3K9me3) și acetilarea H3K9 scăzută (H3K9Ac)) (Figura1B). S-a raportat anterior că reglarea în jos a CK2 induce acești markeri de senescență (activarea SA- -gal colorare, p53-p21Cip1/WAF1cale și SAHF) [16,17,19]. Prin urmare, s-a examinat dacăKCNQ1OT1interacționează cu CK2. Interesant, CK2 ectopic expresia a abrogat inducerea SA- -activitate gal, p53, p21Cip1/WAF1, și H3K9me3, mediate deKCNQ1OT1reglare în jos (Figura1A,B). În plus,KCNQ1OT1 doborarea redus nivelul proteic al CK2 (Figura1B). Aceste rezultate în mod colectiv sugerează căKCNQ1OT1knockdown induce senescența celulară prin reglarea în jos a CK2.
2.2. KCNQ1OT1 Expresia factorului SASP indusă de distrugere și generarea ROS prin CK2 Tăcere în celulele canceroase umane
S-a investigat dacăKCNQ1OT1Reglarea în jos a crescut expresia factorilor SASP datorită rapoartelor că celulele senescente secretă factori proinflamatori.14,15]. KCNQ1OT1knockdown a indus expresia factorilor SASP, inclusiv interleukina (IL)-1 , IL-6 și metaloproteinaza matricei (MMP) 3 (Figura2A). KCNQ1OT1Reglarea în jos a crescut cantitatea de ROS intracelular, deoarece stresul oxidativ este o cauză majoră a senescenței.14,15]. În acest scop, celulele HCT116 și MCF-7 au fost transfectate cuKCNQ1OT1siARN și colorat cu CM-H2DCFDA.KCNQ1OT1knockdown a crescut producția de ROS, așa cum este indicat de schimbarea corectă a fluorescenței FL în timpul citometriei în flux (Figura2B). S-a raportat anterior că reglarea în jos a CK2 induce expresia SASP [20] și generarea ROS [18]. Expresia ectopică a CK2 a abrogat inducerea expresiei factorului SASP și generarea ROS, mediată deKCNQ1OT1reglare în jos (Figura2A,B). Colectiv, aceste rezultate indică faptul căKCNQ1OT1knockdown induce generarea de ROS și inflamația prin reglarea în jos a CK2.

Figura 1. KCNQ10T1 a indus activarea colorării SA--gal, calea p{{53-p21CipI/WAF și trimetilarea H3K9 prin tăcere CK2x în celulele canceroase umane. Celulele HCT116 și MCF{{10}} au fost transfectate cu siARN KCNO1{0T1 timp de două zile în absența sau prezența pcDNA3.1.HA-CK2x. (A) Celulele au fost colorate cu 5-bromo-4-cloro-3-indolil--D-galactozidă și imagini reprezentative au fost obținute la o mărire de 20x (sus). Bară de scară=100 um. Sunt prezentate date reprezentative din trei experimente independente. Graficele reprezintă procentul de celule colorate cu albastru (jos). (B) Imunoblotting a fost utilizat pentru a determina nivelul fiecărei proteine folosind anticorpi specifici (superioare). 3-Actina a fost folosită ca martor. Graficele reprezintă cuantificarea fiecărei proteine în raport cu B-actina (partea de jos). Datele sunt raportate ca SEM mediu.* p < 0,05; ** p < 0,01, ** p < 0,001.H3K9me3, trimetilarea histonei H3 Lys9; H3K9AC, H3 Lys9 acetilare.

Figura 2. Expresia factorului fenotipului secretor asociat senescenței (SASP) indusă de knockdown KCNQ10T1 și generarea de specii reactive de oxigen (ROS) prin tăcere CK2x în celulele canceroase umane. Celulele HCT116 și MCF{{6} au fost transfectate cu KCNO1{ {20}}ARNsi T1 timp de două zile în absența sau prezența pcDNA3.1-HA-CK2a. (A) Nivelul fiecărui ARNm a fost determinat prin reacția în lanț a polimerazei-transcripție inversă (RT-PCR) folosind primeri specifici (superioare). Sunt prezentate date reprezentative din trei experimente independente. Graficele reprezintă cuantificarea fiecărui ARNm în raport cu 6-actina (de jos). (B) Celulele au fost incubate cu 10 UM CM-HDCEDA Intensitatea fluorescenței a fost determinată prin analiza citometriei în flux (sus). Sunt prezentate date reprezentative din trei experimente independente. Graficele arată nivelul relativ de fluorescență (de jos) Datele sunt raportate ca medie 士 SEM. * p < 0,05; ** p < 0,01; *** p < 0,001.
2.3. KCNQ1OT1 a fost implicat în expresia factorului SASP mediată de lipopolizaharide (LPS) prin tăcere CK2 în celulele canceroase umane
Deoarece tratamentul cu LPS determină senescența celulară prin reglarea în jos a CK2 [20], a fost testat dacă LPS a scăzutKCNQ1OT1expresie. Tratament cu LPS (6µg/µL) a redus nivelurile de transcriere aleCK2 șiKCNQ1OT1în celulele canceroase umane (Figura3A). În plus, efectul deKCNQ1OT1asupra expresiei factorului SASP în celulele tratate cu LPS a fost investigată. Cu toate acestea, tratamentul cu LPS (6µg/µL) factor SASP crescut (IL-1 expresia , IL-6 și MMP3) în celulele canceroase umane; tratamentul suplimentar cu pcDNA3.1-KCNQ1OT1 (36,181–37,140) a abrogat inducerea mediată de LPS a factorilor SASP (Figura3B). S-a arătat anterior că acțiunea concertată a miR-760, miR- 186, miR-337-3p și miR-216b a stimulat senescența prematură prin tăcere CK2 proteină în celulele HCT116 [21] și că miR-760 și miR-186 au fost suprareglate în celulele IMR-90 senescente replicative [22]. Au fost determinate modelele de expresie ale acestor miARN afectate de tratamentul cu LPD. Analiza cantitativă în timp real a reacției în lanț a polimerazei (qPCR) a arătat că cantitatea de miR-760 a crescut cu mai mult de 200% atât în celulele HCT116, cât și în cele MCF{-7 tratate cu LPS (6µg/µL), în comparație cu celulele de control. miR-186 nu a fost reglat în sens pozitiv prin tratamentul cu LPS, iar miR-337-3p și miR{-216b au fost reglementate diferit în aceste celule (Figura3C). Astfel, aceste rezultate indică în mod colectiv că LPS a crescut cantitățile de miR-760 prin reglare în josKCNQ1OT1, rezultând CK2 senescență mediată de downregulation.

Figura 3. KCNO10T1 a fost implicat în expresia factorului fenotipului secretor asociat senescenței (SASP) mediată de lipopolizaharide (LPS) prin tăcere CK2x în celulele canceroase umane. (A) Celulele HCT116 și MCF-7 au fost tratate cu LPS (6 ug/uL) timp de două zile. Nivelul fiecărui ARNm a fost determinat prin RI-PCR utilizând primeri specifici (sus). Sunt prezentate date reprezentative din trei experimente independente. B-Actina a fost utilizată ca martor. Graficele reprezintă cuantificarea fiecărui ARNm în raport cu B-actina (de jos). (B) Celulele au fost tratate cu LPS (6 ug/uL) în absența sau prezența pcDNA3.1-KCNO10T1 (36,181-37,140) timp de două zile. Nivelul fiecărui ARNm a fost determinat prin RI-PCR utilizând primeri specifici (stânga). Datele reprezentative din trei experimente independente arată că 3-Actina a fost folosită ca martor. Graficele reprezintă cuantificarea fiecărui ARNm în raport cu -actină (dreapta). (C) Celulele au fost tratate cu LPS (6 ug/uL) timp de două zile ARN total a fost izolat din celule și supus analizei PCR pentru a determina nivelurile relative de miR-760, miR-186, miR{{ 26}}p și miR-216b folosind RNU48 pentru normalizare. Datele sunt afișate ca temei 士 SEM.*p < 0,05; ** p < 0,01; *** p < 0,001.
2.4. KCNQ1OT1 CK2 suprareglat prin sponarea miR-760 în celulele canceroase umane
În continuare, s-a examinat dacăKCNQ1OT1reglează CK2 expresie prin miR-760. Celulele HCT116 și MCF-7 au fost transfectate cu pcDNA3.{1-KCNQ1OT1 (36,181–37,140) sau KCNQ1OT1 siARN, împreună cu un imitator sau inhibitor miR{-760 (secvențele prezentate în tabelul suplimentar S1). Expresia ectopică aKCNQ1OT1(36.181–37.140) a crescut nivelul ARNm deCK2 , în timp ce tratamentul suplimentar cu imitația miR-760 a fost suprimatKCNQ1OT1-mediatCK2 reglare în sus (Figura4A). În contrast,KCNQ1OT1knockdown a redus nivelul ARNm deCK2 , în timp ce tratamentul suplimentar cu un inhibitor miR-760 a fost suprimatKCNQ1OT1mediat de doborâreCK2 reglare în jos (Figura4B). Atât miR-760, cât și inhibitorul nu au putut modifica cantitatea deKCNQ1OT1, ceea ce indică faptul că miR-760 nu a fost un regulator în amonte alKCNQ1OT1. În total, aceste rezultate indică faptul căKCNQ1OT1crește cantitatea deCK2 ARNm prin buretele miR-760. Figura suplimentară S1 arată secvențele și situsurile de legare aleKCNQ1OT1, miR-760 șiCK2 ARNm, determinat folosind TargetScan și Miranda.
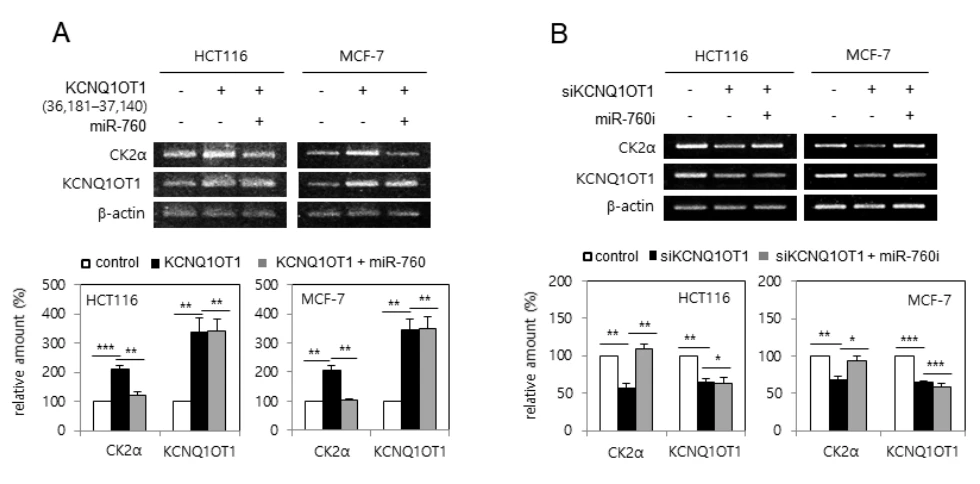
Figura 4. KCNQ10T1 a suprareglat CK2x prin sponging miR-760 în celulele canceroase umane. (A) Celulele HCT116 și MCF-7 au fost transfectate cu pcDNA3.1-KCNO1{0T1 (36,181-37,14{0) timp de două zile în absența sau prezența miR-760. (B) Celulele HCT116 și MCF-7 au fost transfectate cu siARN KCNO10T1 timp de două zile în absența sau prezența unui inhibitor miR-760. Nivelul fiecărui ARNm a fost determinat prin RT-PCR utilizând primeri specifici (sus). Sunt prezentate date reprezentative din trei experimente independente. Graficele reprezintă cuantificarea fiecărui ARNm în raport cu B-actina (de jos). Datele sunt raportate ca medie 士 SEM.* p < 0,05; ** p < 0,01; *** p < 0,001.

2.5. Condiția CR CK2x reglată în sus de miR-760 Reglarea în sens invers prin reglarea KCNQ1OT1 în celulele canceroase umane
S-a presupus că expresia KCNQ1OT1 a fost suprareglată în starea CR, deoarece nivelul de ARNm CK2x a fost reglat în sens pozitiv în condiția CR [24]. Celulele HCT116 și MCF-7 au fost incubate în condiții CR pentru a testa această ipoteză. După cum se arată în Figura 5A, expresia KCNO10T1 și CK2x a fost indusă de CR în aceste celule în care tratamentul suplimentar cu KCNQ10T1 siARN a suprimat inducția CK2a mediată de CR, indicând KCNQ10T1 ca un regulator pozitiv al CK2x în condiții CR. În plus, analiza cu qPCR în timp real a indicat că nivelul miR-760 a scăzut cu 70% în condiții CR, în timp ce nivelurile miR{-186, miR{-216b și miR{{22 }}p în condițiile CR au fost neschimbate sau crescute (Figura 5B). În continuare, a fost examinat efectul miR-760 asupra reglării CK2x mediate de CR. Tratamentul cu un miR-760 imită suprimarea CK2x mediată de oCR, indicând miR-760 ca un regulator negativ major al condițiilor CK2ain CR (Figura 5C). În cele din urmă, analiza gPCR în timp real a arătat că tratamentul cu siRNA KCNO10T1 a crescut nivelurile de miR-760, în timp ce CR a suprimat inducerea miR-760 mediată de knockdown KCNO10T1 (Figura 5D). În total, aceste rezultate indică faptul că CR a reglat în jos miR-760 prin reglarea pozitivă a KCNQ10T1, ducând la o reglare ascendentă a CK2x în celulele canceroase umane. Deoarece s-a raportat că lncRNA SNHG6 acționează și ca aburete de miR-760 în celulele CRC [25], s-a testat dacă CR se regleazăExpresia SNHG6. In orice caz,SNHG6expresia a fost neschimbată în starea CR (datele nu sunt afișate)
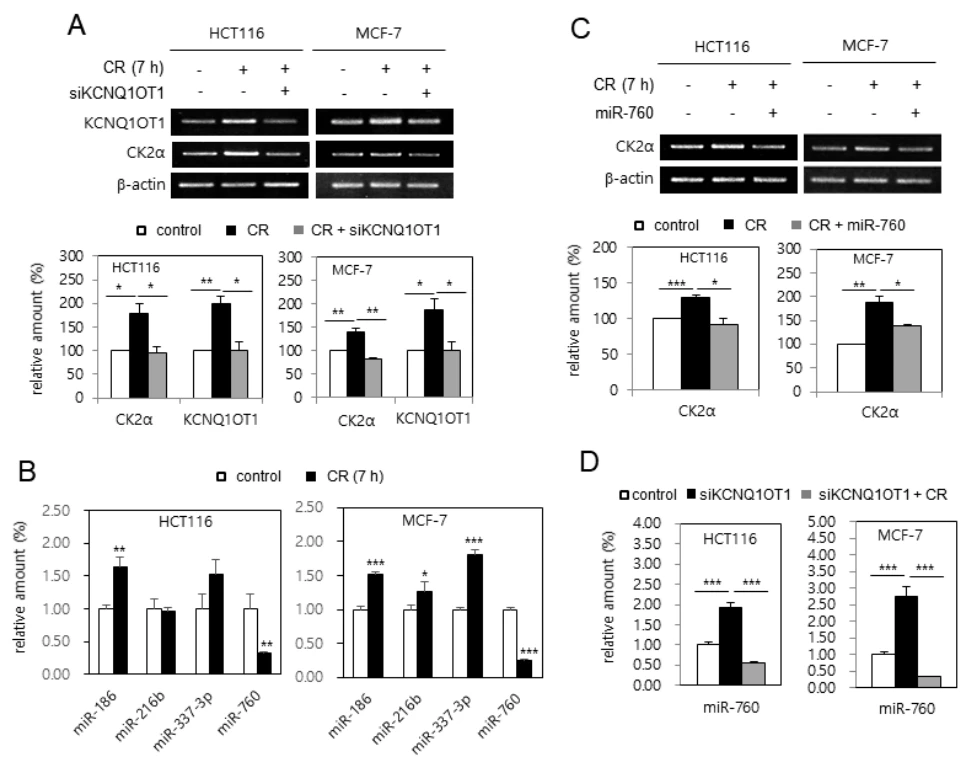
Figura 5. Condiția de restricție calorică (CR) a suprareglat CK2x prin reglarea miR-760 prin reglarea KCNO10T1 în celulele canceroase umane. (A, C și D) Celulele HCT116 și MCF-7 au fost transfectate cu siARN KCNO1{{20}}T1 (A și D) sau miR-760 (C) timp de 1,5 zile și apoi incubat în condiții CR timp de șapte ore. (B) Celulele HCT116 și MCF-7 au fost incubate în condiții CR timp de șapte ore. (A,C) Nivelul fiecărui ARNm a fost determinat prin RT-PCR utilizând primeri specifici (sus) Sunt prezentate date reprezentative din trei experimente independente. 3-Actina a fost folosită ca grafic de control pentru a reprezenta cuantificarea fiecărui ARN în raport cu B-actina (partea de jos). (B,D) ARN-ul total a fost izolat din celule și supus analizei prin qPCR folosind RNU48 pentru normalizare pentru a determina nivelurile relative ale miARN-urilor indicate. Datele sunt afișate ca medie plus SEM * y < 0,05.* p < 0,01;** * p < 0,001.
2.6. KCNQ1OT1 a fost reglat în jos în timpul senescenței replicative în celulele fibroblastelor pulmonare umane, pe care condițiile CR le-au salvat
Deoarece CK2x este reglat în jos în celulele senescente replicative și țesuturile îmbătrânite [16], a fost examinat dacă KCNO1OT1 este reglat în jos în timpul senescenței în celulele fibroblaste pulmonare umane IMR-90. Reducerea KCNO10T1 a scăzut nivelul ARNm al celulelor CK2xin IMR-90 (Figura 6A). În schimb, knockdown KCNO1OT1 a reglat în sus activitatea SA-P-gal în celulele IMR-90, iar expresia ectopică a CK2a a abrogat inducerea activității SA{-3-gal mediată de reglarea în jos a KCNO1OT1 (Figura 6B). Pentru a determina modul în care expresia KCNQ10T1 a scăzut prin senescență replicativă, celulele IMR-90 au fost trecute în mod repetat până când a fost observată o stare asemănătoare senescenței. Majoritatea celulelor de la PDL 47 s-au colorat pozitiv pentru SA-B-gal, în timp ce doar câteva s-au colorat pozitiv pentru SA-B-gal printre celulele cu trecere timpurie (PDL 34) (datele nu sunt prezentate). Nivelurile de transcriere ale KCNO10T1 au scăzut cu 60% în celulele senescente replicative (PDL 47), în comparație cu celulele cu trecere timpurie (PDL 34), ceea ce indică faptul că KCNO10T1 a fost reglat în jos în timpul senescenței replicative. În cele din urmă, condițiile CR au crescut KCNO1OT1 cu 150 la sută în celulele cu trecere timpurie (PDL 34) în comparație cu condițiile normale de calorii. Cu toate acestea, condițiile CR au crescut KCNO10T1 mai puternic (cu 250 la sută) în celulele senescente replicative (PDL 47) în comparație cu condițiile calorice normale. indicând faptul că CR poate salva expresia scăzută a KCNO10T1 și CK2x, mediată de senescența replicativă (Figura 6C). În mod colectiv, aceste date indică faptul că senescența replicativă scade expresia CK2x prin reglarea în jos a KCNQ10T1 și că CR poate suprima senescența replicativă prin intermediul unei axe KCNO1OT1-CK2
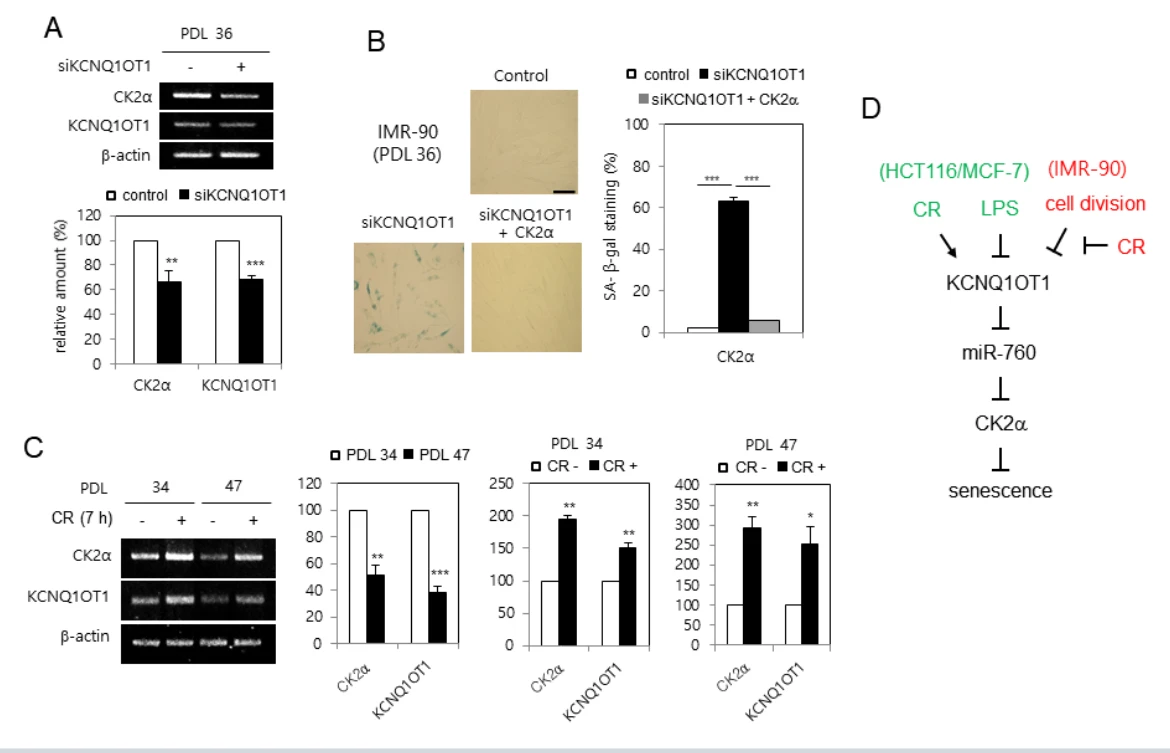
Figura 6. KCNQ1011 a fost reglat în jos în timpul senescenței replicative în celulele fibroblastelor pulmonare umane, care au putut fi salvate prin condiții de restricție calorică (CR). (A) Celulele IMR-90 (PDI36) au fost transfectate cu siARN KCNO10T1. Nivelul fiecărui ARNm a fost determinat prin RT-PCR utilizând primeri specifici (sus). Sunt prezentate date reprezentative din trei experimente independente3-Actina a fost folosită ca martor. Graficele reprezintă cuantificarea fiecărui ARNm în raport cu 6-actina (de jos). (B) Celulele IMR-90 (PDL 36) au fost transfectate cu ARNsi KCNO10T1 timp de două zile în absența sau prezența pcDNA3.1-HA-CK2a. Celulele au fost colorate cu 5-bromo-4-cloro3-indolil--D-galactozidă și imagini reprezentative au fost obținute la o mărire de 20x (stânga) Bară de scară=100 um . Sunt prezentate date reprezentative din trei experimente independente. Graficele reprezintă procentul de celule colorate cu albastru (dreapta). (C) Celulele IMR-90 ale PDL 34 și PDL 47 au fost incubate în condiții CR timp de șapte ore. Nivelul fiecărui ARNm a fost determinat prin RT-PCR utilizând primeri specifici (stânga). Sunt prezentate date reprezentative din trei experimente independente3-Actina a fost folosită ca martor. Graficele reprezintă cuantificarea fiecărui ARNm în raport cu 6-actina (dreapta). Datele sunt raportate ca medie 土 SEM.* p < 0,05, ** p < 0,01; *** p < 0,001. (D) Model posibil care ilustrează rolurile KCNO10T1 pentru senescență și CR. PDL, nivelul de dublare a populației