

Transmiterea virusului pestei porcine clasice la purceii concubinați cu diferite stări imunitare în urma vaccinului viu atenuat
Nov 28, 2023
Rezumat simplu:
Pesta porcină clasică este un agent patogen extrem de periculos care afectează porcii domestici. Vaccinarea cu vaccinul viu modificat este esențială pentru prevenirea și controlul pestei porcine clasice. Cu toate acestea, mulți factori, cum ar fi anticorpii derivați matern prin colostru, ar putea interfera cu eficacitatea vaccinului viu, ducând la o protecție incompletă în efectivele comerciale. În acest studiu, am investigat transmiterea virusului pestei porcine clasice la purcei experimentali cu diferite stări imunitare post-vaccinare. Un purcel fără agent patogen specific infectat cu virusul pestei porcine clasice a servit drept donator viral și invadator primar și a fost cohabitat cu purcei cu anticorpi de origine maternă care au suferit sau nu vaccinați. Conform rezultatelor, majoritatea purceilor cu anticorpi de origine maternă care au fost vaccinați au fost pe deplin protejați de transmiterea de contact de la donatorul viral și au blocat transmiterea virală către terț (acei purcei expuși secundar prin coabitare). Imunitatea mediată de celule, reprezentată de celule care secretă interferon- -specifice, a servit drept cheie pentru eliminarea și recuperarea virală. Dimpotrivă, purceii nevaccinați cu niveluri scăzute de anticorpi derivați materni au accelerat infecția cu virusul pestei porcine clasice în urma invaziei virale. În concluzie, vaccinarea încă induce imunitate solidă în efectivele comerciale sub interferență cu anticorpi derivați matern și poate bloca transmiterea virală în efective.

cistanche plant-creșterea sistemului imunitar
Abstract:
Pesta porcină clasică (LCR) este o boală hemoragică sistemică care afectează porcii domestici și mistreții. Vaccinul viu modificat (MLV) induce o protecție rapidă și solidă împotriva infecției cu virusul CSF (CSFV). Anticorpii derivați de la mamă (MDA) prin colostru ar putea interfera cu eficacitatea MLV, ducând la o protecție incompletă împotriva infecției cu CSFV la porci. Acest studiu a investigat transmiterea CSFV printre purceii experimentali cu diferite stări imune post-MLV. Nouăsprezece purcei, 18 cu MDA și 1 purcel fără agent patogen specific infectat cu CSFV care a servit ca donator de CSFV, au fost coabitați cu purcei cărora li sa administrat sau nu MLV. Cinci șasemi dintre purceii cu MDA cărora li s-a administrat o doză de MLV au fost complet protejați de transmiterea prin contact de la donatorul de CSFV și nu au transmis CSFV purceilor expuși secundar prin conviețuire. Imunitatea mediată de celule, reprezentată de celulele care secretă interferon- -specifice anti-CSFV, a fost cheia pentru eliminarea și recuperarea virală. După conviețuirea cu un donator de CSFV, purceii nevaccinați cu niveluri scăzute de MDA au prezentat infecție cu CSFV și au răspândit CSFV la alți purcei prin contact; cei cu niveluri ridicate de MDA s-au recuperat, dar au acționat ca purtători asimptomatici. În concluzie, MLV încă induce imunitate solidă în efectivele comerciale sub interferența MDA și blochează transmiterea CSFV în aceste efective.
Cuvinte cheie:
pesta porcină clasică; vaccin viu modificat; anticorp derivat matern; transmitere
1. Introducere
Pesta porcină clasică (PSC) este o boală hemoragică transfrontalieră, foarte contagioasă, care afectează porcii domestici și mistreții și este cauzată de virusul pestei porcine clasice (CSFV) [1,2]. LCR este o boală notificată de către Organizația Mondială pentru Sănătatea Animalelor (WOAH), iar LCR este încă o boală endemică în Asia, America de Sud, America Centrală și Caraibe. Doar țările din America de Nord, Oceania și Europa de Vest au eradicat cu succes CSF [3–6].
CSFV este un virus ARN cu o singură tulpină învelit alPestivirusgenul din familia Flaviviridae care cuprinde și virusul diareei virale bovine și virusul bolii de frontieră [1,2]. Genomul viral conține aproximativ 12,3 kb și codifică 3898 de aminoacizi de poliproteină, care sunt ulterior procesați în patru structurali (C, Erns, E1 și E2) și opt nestructurali (Npro, p7, NS2, NS3, NS4A, NS4B, NS5A, și NS5B) prin proteaze virale și celulare [7]. Pe baza secvențelor E2 sau NS5B, CSFV este clasificat în trei genotipuri cu trei sau patru subtipuri (1.1, 1.2, 1.3; 2.1, 2.2, 2.3; 3.1, 3.2, 3.3, 3.4) [8]. În funcție de virulența CSFV și de factorii porci, inclusiv vârsta, rasa, starea de sănătate și starea imunitară, porcii infectați cu CSFV pot prezenta semne clinice fie acute, subacute sau cronice [9-11]. Porcii infectați cu CSFV de înaltă virulență prezintă febră acută și leziuni hemoragice severe și excretă încărcături virale mari în fecale, salivă și secreții în timpul zilelor scurte de supraviețuire. În schimb, porcii infectați cu CSFV cu virulență moderată și cu virulență scăzută prezintă semne clinice subacute și cronice și leziuni mai ușoare și excretă niveluri moderate-scăzute de CSFV în fecale, salivă și secreții în timpul zilelor lor relativ mai lungi de supraviețuire [12,13]. ]. Pe teren, porcii infectați în principal pot juca un rol proeminent în transmiterea secundară a CSFV la alți porci cu imunitate variabilă la CSFV. Transmisibilitatea CSFV cu virulență moderată și cu virulență mare este mai mare decât cea a CSFV cu virulență scăzută [12,13].
Vaccinarea este crucială pentru prevenirea și controlul PPC în țările endemice. Vaccinul viu modificat (MLV) este un vaccin de înaltă eficacitate, sigur și accesibil, care este cel mai utilizat în rândul efectivelor comerciale. MLV poate induce rapid imunitatea pentru a oferi protecție parțială la 3 zile după vaccinare și protecție completă la 5 zile după vaccinare [14-16]. Cu toate acestea, mulți factori, inclusiv starea de sănătate a porcilor de calitatea vaccinului și nivelul de anticorpi derivați matern (MDA), pot reduce eficacitatea MLV, ducând la protecția incompletă a porcilor vaccinați [14-16]. În efectivele cu LCR endemice, momentul vaccinării MLV depinde de nivelurile MDA ale porcilor; nivelurile ridicate de MDA interferează cu eficacitatea MLV, iar nivelurile scăzute de MDA cresc riscul de infecție al purceilor [17,18]. Prin urmare, formulările programelor de vaccinare MLV în efective trebuie să se bazeze pe scăderi ale nivelurilor de MDA. Un program de vaccinare implementat în mod regulat împotriva CSF în Taiwan implică vaccinarea scroafelor gestante pentru a furniza MDA prin colostrul lor nou-născuților și apoi administrarea primei doze de MLV purceilor la vârsta de 3-12 săptămâni. Conform supravegherii din Taiwan, titrurile medii de anticorpi neutralizanți (NA) anti-CSFV ai MDA la purcei la momentul primei vaccinări MLV sunt mai mari de 1:32 [19], ceea ce ar putea afecta eficacitatea MLV și ar putea duce la diverse stări imunitare în efective. Acest studiu descrie un experiment pe animale pentru a examina capacitatea MLV de a proteja purceii cu diferite niveluri de MDA după coabitarea cu un purcel infectat cu CSFV care a acționat ca donator de CSFV (adică „invadatorul primar”).
2. Materiale și metode
2.1. Celule și Virus
Celulele de rinichi de porc liber de tip-1-circovirus porcin-15 (PK{-15) au fost cultivate în mediu minim esențial (Thermo Fisher Scientific, Carlsbad, CA, SUA) cu 5% ser fetal bovin (FBS) și incubat la 37 ◦C în 5% CO2. Celulele PK-15 au susținut propagarea CSFV, inclusiv tulpina de vaccin Lapinized Philippines Coronel (LPC) a genotipului 1.1 și tulpina TD/96 a genotipului 2.1. Titrurile de virus ale tulpinilor LPC și TD/96 au fost 107,71 și, respectiv, 105,87 doză infecțioasă a culturii de țesut 50% (TCID50).
2.2. Design experimental
Un total de purcei în vârstă de {{0}}săptămână, cuprinzând 1 purcel fără agent patogen specific (SPF) fără NA anti-CSFV (Grupa 1) și 18 purcei sănătoși (Grupele 2-5) din LPC vaccinați în experiment au fost utilizate scroafe dintr-un efectiv lipsit de CSFV (Figura 1). Cei 18 purcei sănătoși au fost împărțiți aleatoriu în patru grupuri (grupele 2-5); mijloacele titrului anti-LPC NA (log2) dintre grupurile 2–5 au fost, respectiv, 3,7 ± 2,2, 3,7 ± 2,3, 4,3 ± 2,2 și 4,3 ± 1,3 log2 ori și nu au fost semnificativ diferite la 0 zile post-experiment (DPE). Purcelul SPF (Grupul 1) a fost inoculat în mod ironic utilizând tulpina 5 × 10⁵ TCID50 TD/96 la 7 DPE și a servit ca invadator primar sau donator de CSFV atunci când a conviețuit în Camera 12 cu Grupurile 2 și 3 (Figura 1). Pentru a testa dacă MDA au redus eficacitatea MLV, Grupul 2 (n=6) a fost vaccinat cu o singură doză de vaccin LPC (peste 1 × 10⁴ TCID50/doză) la 0 DPE. Pentru a testa capacitatea de protecție a MDA, Grupul 3 (martorul pentru Grupul 2; n=3) nu a fost vaccinat cu vaccinul LPC, iar acești purcei au prezentat astfel putrezire MDA după 7 zile după primul contact cu invadatorul primar. Grupul 1 (invadatorul primar) a cohabitat cu Grupurile 2 și 3 timp de 10 zile (de la 7 la 17 DPE). Grupul 2 a fost apoi transferat în Camera 2 pentru a servi ca invadatori secundari prin coabitare cu Grupul 4 (n=6) de la 17 la 36 DPE. Grupul 3 a fost transferat în Camera 4 pentru a coabita cu Grupul 5 (n=3). Grupele 4 și 5 au fost astfel purcei cu 17 zile de degradare a MDA după primul contact cu invadatorii secundari. Comitetul instituțional de îngrijire și utilizare a animalelor al Institutului de Cercetare în Sănătatea Animalelor a aprobat acest experiment pe animale (numărul de aprobare A09007).
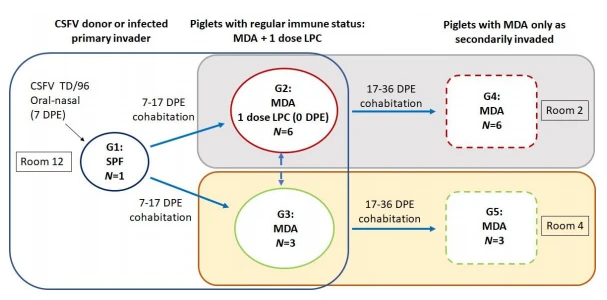
Figura 1. Proiectare experimentală.
Animalele au fost monitorizate zilnic pentru semne clinice și fiecare parametru a fost notat de la 0 la 3, reprezentând normal până la sever, conform metodei lui Mittelholzer [19]. Temperatura rectală a fost măsurată și probe de sânge, saliva și fecale au fost colectate de două ori pe săptămână până la 35 DPE. Probele au fost analizate pentru încărcările CSFV și anticorpii anti-CSFV. O necropsie a fost efectuată la 18 DPE pentru Grupa 1, la 36 DPE pentru Grupele 2 și 3 și la 39 DPE pentru Grupele 4 și 5. Probele de mediu (adică, tampoane din gard, fecale de pe podea, jgheab, și fântâna de băut) au fost analizate și pentru CSFV.
2.3. Reacția în lanț a polimerazei în timp real cu transcripție inversă cantitativă (QRRT-PCR) a CSFV
ARN-urile virale ale probelor au fost extrase de QIAamp® Viral RNA Mini Kit (QIAGEN, Hilden, Germania) și au fost detectate prin reacția cantitativă în lanț a polimerazei cu transcripție inversă (QRRT-PCR) [20]. QRRT-PCR a fost utilizat pentru a detecta diferitele genotipuri și a testa cantitativ încărcările CSFV ale probelor.

cistanche beneficii pentru bărbați-întărește sistemul imunitar
Faceți clic aici pentru a vedea produsele Cistanche Enhance Immunity
【Cereți mai multe】 E-mail:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
2.4. NA anti-CSFV
Încălzirea serului purceilor la 56 ◦C complement inactivat a permis detectarea anti-LPC și TD/96 NA. Pe scurt, probele de ser diluate în serie de 2-ori, începând cu 1:4, au fost amestecate cu volume egale de 100 TCID50 din tulpina LPC sau TD/96. Amestecuri au fost incubate la 37 ◦C timp de 1 oră și ulterior transferate în celule PK-15 în plăci cu 96-godeuri. După incubare timp de 3 zile, celulele au fost fixate și colorate pentru a detecta prezența antigenului CSFV prin test de fluorescență indirectă. Titrul de neutralizare al anticorpului este log2 al factorului de diluție al anticorpului (reciproc de diluție) atunci când 50% din godeuri sunt protejate de infecție.
2.5. Celule secretoare de interferon specific CSFV (IFN)- -
Pentru a evalua imunitatea mediată de celule anti-CSFV (CMI) a purceilor, a fost efectuat un test de răspuns IFN specific CSFV ex vivo al celulelor mononucleare din sângele periferic (PBMC). PBMC-urile din sângele anticoagulat cu EDTA au fost supuse centrifugării la 40{0×g utilizând Histopaque-1077 (Sigma-Aldrich, St. Louis, MO, SUA). PBMC-urile au fost suspendate în mediu RPMI 1640 (Thermo Fisher Scientific, Carlsbad, CA, SUA) care conține 10% (vol/vol) FBS inactivat la căldură, 100 unități/mL penicilină G, 100 µg/mL streptomicină și 0,25 µg/mL mL amfotericină B. Numărul de PBMC care secretă IFN- -specifice CSFV a fost detectat prin testul ELISPOT enzimatic IFN porcin-o singură culoare (CTL, Shaker Heights, OH, SUA). În plăcile de 96-godeuri, PBMC-uri la 5 × 10⁶ celule/ml la 100 µL per godeu cu anticorp de captare IFN porcin au fost alocate grupului simulat (inoculat cu mediu RPMI 1640), grupului TD/96 (infectat cu 0,1 MOI) și grupul ConA (suplimentat cu 5 ug/mL concanavalin A; Sigma-Aldrich, St. Louis, MO, SUA), servind drept control pozitiv. Stimulările duplex au fost folosite de fiecare dată. După 48 de ore de stimulare, godeurile au fost spălate, anticorpul detectat cu IFN{31}}a fost legat și substratul a fost însămânțat. Petele din fiecare godeu au fost analizate și testate utilizând Analizorul CTL.
2.6. Imunohistochimie
Țesuturile limfoide au fost examinate prin test imunohistochimic utilizând sistemul de detectare Super Sensitive Polymer HRP IHC (BioGenex, Haga, Țările Olandei) și anticorpul monoclonal 1C7A1 împotriva tulpinilor de genotip 2.1 CSFV [21]. Dezvoltarea unei culori maro indică prezența CSFV.
2.7. Statistici
O analiză a varianței și testul Duncan cu intervale multiple au fost utilizate pentru a determina diferențele semnificative statistic între grupuri. Analiza datelor a fost efectuată folosind SAS (SAS Institute, Cary, NC, SUA). O valoare p mai mică de 0,05 a indicat o semnificație statistică.
3. Rezultate
3.1. Semne clinice
Toți purceii au fost sănătoși înainte de experiment (Tabelul 1). Purcelul din Grupa 1 a fost donatorul de CSFV (invadatorul primar) și a fost inoculat cu tulpina TD/96. Febra și semnele clinice asociate cu CSFV din grupul 1 au fost detectate la 12 DPE și, respectiv, 13 DPE, cu scoruri în continuă creștere de la 13-18 DPE care au atins vârful cu un scor de 20 la 18 DPE. Pentru purceii din Grupele 2 și 3 care au conviețuit cu donatorul de CSFV, Grupul 2, care a constat din purceii cu MDA care au fost vaccinați cu vaccinul LPC, au fost sănătoși și nu au prezentat febră sau semne clinice asociate cu CSFV în timpul experimentului. . Cu toate acestea, cei din Grupul 3, care cuprindea purceii cu MDA care nu au fost supuși vaccinării LPC, au prezentat febră la 23 DPE (16 zile după primul contact, DP1C), iar numărul de porci febrili a crescut de la 23-36 DPE. Febra a fost corelată cu semnele clinice asociate cu CSFV care s-au manifestat la 24 DPE (17 DP1C). Deși un purcel (8138) a prezentat semne clinice ușoare (scoruri sub 5), ceilalți doi purcei s-au deteriorat clinic de la 24-36 DPE, cu scorurile lor variind între 12 și 16. Purceii 8136 din grupul 3 au murit la 29 DPE. Purceii din Grupa 4 care au fost în contact (conviețuiți) cu cei din Grupa 2 au fost, de asemenea, sănătoși și nu au prezentat febră sau semne clinice asociate cu CSFV în perioada experimentală. Purceii din grupul 5 care au fost în contact cu cei din grupul 3 au prezentat febră la 27 DPE (10 zile după contactul secund, DP2C) și semne clinice asociate cu CSFV la 30 DPE (13 DP2C). Numărul de purcei febrili și scorurile clinice din grupul 5 au crescut în timp; scorul la 39 DPE a fost de 21 ± 1,4, variind între 19 și 22.
Tabelul 1. Procentul de purcei febrili în fiecare grupă în perioada experimentală.

Conform parametrilor clinici, prezența numai MDA-urilor (Grupa 3) nu a putut proteja purceii de transmiterea prin contact indusă de invadatorul primar (Grupa 1). O singură doză de vaccin LPC în plus față de MDA (Grupul 2; adică practica aplicată pe scară largă) a oferit protecție împotriva transmiterii prin contact indusă de invadatorul primar (Grupa 1; Tabelul 1). Practica de vaccinare aplicată pe scară largă a beneficiat și purceilor invadați secundar (adică, Grupul 4, care avea doar MDA, dar nu prezentau febră și semne clinice). Clinic, situația din Grupa 5 (purceii cu transmitere de contact indusă de invadatorii secundari) a recapitulat situația din Grupa 3 (transmitere de contact indusă de invadatorul primar).
3.2. Viremia CSFV
Tulpina CSFV TD/96 nu a fost detectată în sângele niciunuia dintre purcei înainte de experiment (Figurile 2A și 3A). După inocularea TD/96, viremia TD/96 la purceii de grup 1 a fost detectată mai întâi la 10 DPE (3 zile după inoculare, POI) și a fost detectată continuu până la 17 DPE. Încărcările CSFV au crescut de la 101,2 TCID50/mL la 10 DPE la 106,4 TCID50/mL la 17 DPE. În grupul 2, cuprinzând purceii cu vaccinare LPC care au coabitat cu invadatorul primar, viremia TD/96 a fost detectată la un singur purcel (8134) de la 21-35 DPE. Încărcăturile cu CSFV în sângele lui Piglet 8134 au atins vârful (104,9 TCID50/mL) la 24 DPE și ulterior au scăzut la 101,7 TCID50/mL la 35 DPE. În grupul 3, cuprinzând purceii fără vaccinare LPC care au coabitat cu invadatorul primar, viremia TD/96 a fost detectată pentru prima dată la 66,7% (2/3) dintre purcei la 21 DPE (14 DP1C) și toți au fost pozitivi la 24 de ani. DPE. Cu toate acestea, Piglet 8138 a fost negativ pentru viremie TD/96 de la 28-35 DPI (Figura 2A). În grupa 4, formată din purceii care au coabitat cu grupa 2 în camera 2, viremia TD/96 nu a fost detectată în perioada experimentală. Toți purceii din Grupul 5, care au cuprins purceii care au fost în contact cu Grupul 3, au fost pozitivi pentru viremie TD/96 de la 31-35 DPE. Încărcările CSFV au variat între 105,1 și 106,7 TCID50/mL la 35 DPE (Figura 3A). În loturile 2 și 3, prezența MDA a întârziat prima detecție a viremiei până la 10 DP1C (adică purceii au rămas asimptomatici până la 17 DPE; Tabel 1) cu invadatorul primar, comparativ cu ziua 3 POI în grupul 1 în cazul acut. fază. Doza unică suplimentară de vaccin LPC (Grupul 2) a redus procentul de porci viremici cu 83% (Figura 2A). În mod similar, doza unică suplimentară de vaccin LPC a redus încărcăturile virale din sânge de la 28-35 DPE (Figura 3A). Vaccinarea cu LPC a grupului 2 a beneficiat, de asemenea, purceii din grupul 4 cu care au conviețuit ulterior (invaziați secundar), în ciuda faptului că unul dintre purceii din grupul 2 a avut viremie tranzitorie (Figura 2A) și saliva (Figura 2B) și eliminarea fecale (Figura 2C) a TD. /96. Această modificare a statusului viremic s-a corelat cu cea determinată pe baza parametrilor clinici (Secțiunea 3.2), deși detectarea de laborator a fost mai sensibilă.
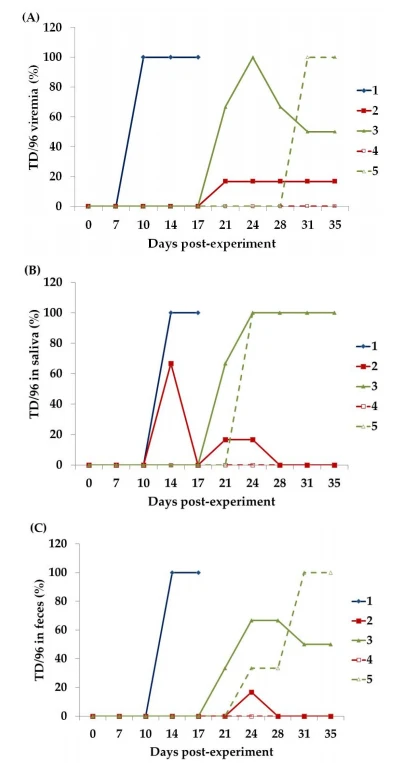
Figura 2. Numărul (procentul) de purcei pozitivi pentru TD/96 detectat prin QRRT-PCR [20] din (A) sânge, (B) salivă și (C) fecale ale purceilor din fiecare grup în perioada experimentală. Purceii din Grupa 1 a fost inoculat în mod ironic cu TD/96 la 7 DPE și a servit drept donator de CSFV (adică, invadator primar) pentru Grupurile 2 și 3. Purceii din Grupul 2 care au fost supuși vaccinării LPC la 0 DPE și cei din Grupul 3 care nu a fost supus vaccinării LPC în coabit cu purceii din grupa 1 din 7-17 DPE. Purceii din Grupele 4 și 5 au conviețuit cu cei din Grupele 2 și 3 (adică invadatori secundari), respectiv, de la 17-36 DPE.
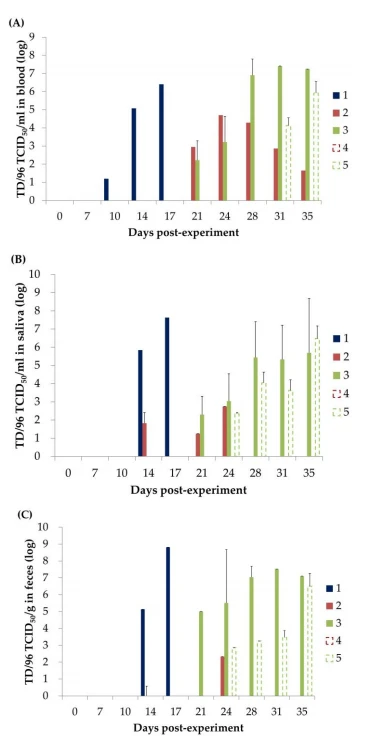
Figura 3. Încărcăturile cu CSFV sunt prezente în sângele (A), salivă (B) și fecalele (C) ale purceilor din fiecare grup.
3.3. Pierderea LCR în saliva
Tulpina CSFV TD/96 nu a fost detectată în saliva niciunuia dintre purcei înainte de experiment (Figurile 2B și 3B). Saliva purcelului din Grupa 1 a fost mai întâi pozitivă pentru TD/96 la 14 DPE (7 DP1C), care a continuat până la 17 DPE. Încărcările CSFV au crescut de la 105,8 TCID50/mL la 14 DPE la 107,6 TCID50/mL la 17 DPE. În special, la purceii din Grupa 2 care au fost vaccinați cu LPC și au coabitat cu donatorul de CSFV, TD/96 a fost detectat pentru prima dată în 66,7% (4/6) din probele de salivă la 14 DPE (7 DP1C), care a devenit negativ. după aceea. Mai târziu, un alt purcel (1/6, Purcel 8134 cu viremie TD/96; Figura 2A), a aruncat TD/96 în salivă de la 21–24 DPE la 101,2 și 102,7 TCID50/mL, un nivel mai scăzut decât cel al purceilor menționați mai sus. . În grupul 3 cu purceii cu MDA numai și fără vaccinare LPC care au conviețuit cu donatorul de CSFV, TD/96 a fost inițial detectat în 66,7% (2/3) din probele de salivă la 21 DPE și toate probele de salivă au fost pozitive la 24 DPE. În grupul 4, care cuprinde purceii care au coabitat cu cei din grupul 2, TD/96 nu a fost detectat în probele de salivă în timpul experimentului, în timp ce în grupul 5, care cuprinde purceii care au conviețuit cu cei din grupul 3, toate probele de salivă au fost pozitive pentru TD/96 de la 24–35 DPE. Încărcările CSFV au crescut în timp și au variat de la 105,9 la 107,3 TCID50/mL cu 35 DPE. Un total de patru șesime dintre purceii din grupul 2 (cu vaccinare LPC în doză unică) au avut saliva TD/96-pozitivă la 14 DPE înainte de viremie. CSFV a fost detectat mai devreme la purceii din Grupa 2 care au fost în contact cu purceii din Grupa 1 în timpul mușcării TD/96. Un purcel (Piglet 8134) din grupul 2 a prezentat mai târziu pierderea tranzitorie de la 21-24 DPE, care este mai probabil reprezentativă pentru replicarea CSFV în glandele salivare după viremie. Conform comparației dintre loturile 2 și 3, vaccinarea LPC a scăzut excreția de CSFV.
3.4. Deversarea LCR în fecale
Tulpina CSFV TD/96 nu a fost detectată în fecalele niciunuia dintre purcei înainte de experiment (Figurile 2C și 3C). Fecalele purceilor din grupa 1 au fost TD/96 pozitive mai întâi la 14 DPE (7 DPIC), care au continuat până la 17 DPE. Încărcările CSFV au crescut de la 105,1 TCID50/g la 14 DPE la 108,8 TCID50/mL la 17 DPE. În grupul 2, cuprinzând purceii cu vaccinare LPC care au conviețuit cu donatorul de CSFV din Grupul 1, doar Porcelul 8134 a fost vărsat temporar la 24 DPE (17 DPIC), în timp ce toți ceilalți purcei din Grupul 2 au fost negativi. În grupul 3, cuprinzând purceii fără vaccinare LPC care au conviețuit cu donatorul CSFV, două treimi dintre purcei (toți cu excepția Purcelui 8138) au fost pozitivi între 21 (14 DP1C) și 35 DPE, timp în care încărcăturile cu CSFV au crescut de la 105,1. TCID50/g la 21 DPE până la 107,5 TCID50/mL la 31 DPE. Cu toate acestea, probele fecale de Piglet 8138 cu viremie tranzitorie TD/96 nu au fost pozitive pentru TD/96. În grupul 4, format din purceii care au coabitat cu cei din grupul 2, toate probele de fecale au fost negative pentru TD/96 în timpul perioadei experimentale. În grupul 5, care cuprindea purceii care au coabitat cu grupul 3, numărul de probe fecale TD/96-pozitive a crescut în timp de la 24–35 DPE, iar încărcăturile au variat între 105,7 și 107,2 TCID50/g la 35 DPE. . În Grupul 5, prima detecție a avut loc la 24 DPE (7 DP2C), care a fost similar cu cel din Grupul 1 (14 DPE), iar profilul general a fost paralel cu cel al viremiei (Figura 2A), sugerând că CSFV s-a replicat local după viremie. . După cum se detaliază în secțiunile 3.3 și 3.4, fecalele și saliva au fost vehiculele principale ale transmiterii prin contact cu CSFV.
cistanche tubulosa-imbunatateste sistemul imunitar
3.5. Încărcări de CSFV în țesuturi obținute prin necropsie
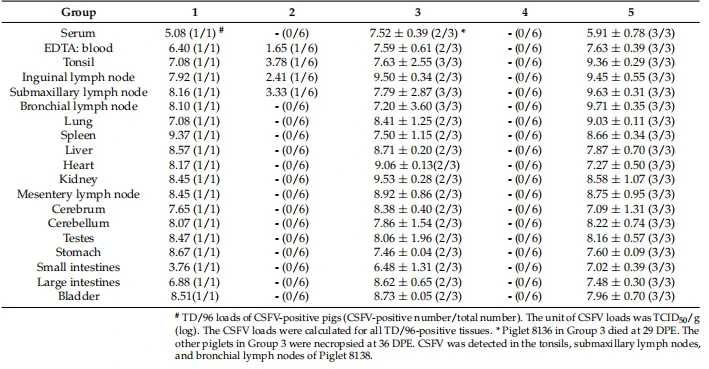
Țesuturile purceilor donatori de CSFV din Grupa 1 și ale purceilor din Grupele 3 și 5 cu care a conviețuit au fost TD/96 pozitive (Tabelul 2). Încărcările TD/96 în țesuturile purcelului din Grupa 1 au variat între 103,76 și 109,37 TCID50/g. În grupul 5, cuprinzând purceii care au fost în contact cu cei din grupul 3, TD/96 a fost detectat la toți purceii și distribuit în toate țesuturile, cu încărcături mai mari în organele hematolimfoide (amigdale, ganglioni limfatici și splină) și în acele organe. cu o cantitate mai abundentă de sânge (ficat, plămâni, inimă și rinichi), așa cum este prezentat în Figura 2A, C. Cele mai mari încărcări TD/96 au fost în țesuturile limfoide (peste 109,0 TCID50/g). În schimb, țesuturile nehematolimfoide de la purceii coabitați din Grupele 2 și 4, cu excepția Purcelui 8134 din Grupul 2, care aveau viremie tranzitorie TD/96, au fost pozitive la nivel scăzut de TD/96 numai în sânge, amigdale, ganglioni limfatici inghinali. , și ganglionii limfatici submaxilari, cu aceste niveluri variind între 101,65 și 103,78 TCID50/g. În grupul 3, cuprinzând purceii fără vaccinare LPC care au fost în contact cu donatorul de CSFV din Grupul 1, TD/96 a fost detectat în toate țesuturile a doi dintre cei trei purcei (cu excepția Purcelui 8138). Purceaua 8138 din grupa 3, care avea viremie tranzitorie TD/96, avea TD/96 în amigdale, ganglioni limfatici submaxilari și ganglioni limfatici bronșici, deși încărcăturile virale au fost mai mici decât media, variind între 103,08 și 104,69 TCID50/mL.
Tabelul 2. Încărcările cu CSFV detectate în diferite țesuturi ale purceilor prin QRRT-PCR CSFV
3.6. CSFV în mediul experimental
Gardul, fecalele de pe podea, jgheabul de alimentare și fântâna de băut din fiecare cameră experimentală au fost testate pentru TD/96 prin QRRT-PCR (Tabelul 3). TD/96 a fost detectat la 14 și 17 DPE în fecalele de pe podeaua Camerei 12, în care donatorul de CSFV din Grupul 1 a conviețuit cu purceii din Grupele 2 și 3. Gardul, jgheabul și fântâna de băut au fost toate negative. Eșantioanele din Camera 2 în care Grupurile 2 și 4 au conviețuit au fost toate negative de la 21-35 DPE. TD/96 a fost detectat pentru prima dată în fecalele de pe podeaua Camerei 4 (Grupurile 3 și 5) la 24 DPE. Ulterior, TD/96 a fost detectat pe gard, jgheab și fântâna de băut din Camera 4 de la 28-35 DPE. Aceste rezultate indică faptul că fecalele (care ar putea fi potențial prezente în toate tipurile de probe de mediu) și saliva (care ar fi prezentă cel mai probabil în probele de jgheab și fântână de băut) au fost vehiculele principale pentru transmiterea prin contact. Excreția virală tranzitorie a purceilor din Grupa 2 (Figurile 2 și 3) nu a fost introdusă în Camera 2, unde aceștia au coabitat cu purceii din Grupul 4.
Tabelul 3. Încărcările CSFV ale probelor de mediu din încăperile experimentale.

3.7. PBMC-uri care secretă IFN- -specifice CSFV
Celulele secretoare de IFN- -specifice CSFV au fost examinate în PBMC-urile purceilor din Grupurile 2 până la 5 între 7 și 35 DPE (Figura 4). La purceii din Grupul 2, numărul de celule secretoare de IFN- -, deși la o frecvență mai mică de 0,1% din PBMC, a fost semnificativ mai mare decât cel din Grupurile 3, 4 și 5. între 7 și 35 DPE. Numărul de celule secretoare de IFN- -la Purceii 8134 din Grupul 2, care au avut viremie tranzitorie TD/96 într-un interval de timp similar (Figura 2A), s-a corelat cu numerele semnificativ mai mici de 56 (21 DPE) și 62 (28). DPE; media grupului Mai mare sau egală cu 116); cu toate acestea, aceste cifre au atins media grupului cu 35 DPE. Numărul de celule care secretă IFN- -specifice CSFV din Grupurile 3, 4 și 5 nu a fost semnificativ diferit.
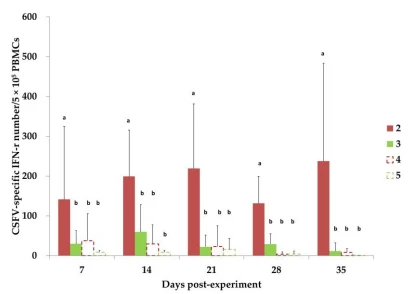
Figura 4. Celulele secretoare de IFN- -specifice CSFV au fost examinate în PBMC-urile purceilor din Grupurile 2 până la 5 între 7 și 35 DPE. Purceii din Grupa 2 cu vaccinare LPC la 0 DPE și cei din Grupul 3 fără vaccinare LPC au conviețuit cu purceii donatori CSFV din Grupa 1 de la 7 la 17 DPE. Purceii din Grupele 4 și 5 au conviețuit cu cei din Grupele 2 și, respectiv, 3, de la 17 la 35 DPE. Valorile cu litere superscripte diferite, a și b, indică o diferență semnificativă statistic (p < 0,05) între ele. Nu există diferențe semnificative între valorile care conțin aceeași literă
3.8. NA anti-CSFV
NA anti-CSFV din serurile de purcei au fost generate ca răspuns fie la tulpina LPC (Figura 5A), fie la tulpina TD/96 (Figura 5B). NA anti-CSFV nu au fost detectate la donatorul de grup 1 CSFV între 7 și 17 DPE. Serurile purceilor din grupele 2 până la 5 la {{10}} DPE au prezentat titruri cuprinse între 5 și 7 log2 (între 32- și 128-ori). După ce purceii din Grupa 2 au fost vaccinați cu vaccinul LPC și au cohabitat cu donatorul de CSFV, titrul mediu nu a scăzut între 0 și 28 DPE. Datorită creșterii NA anti-LPC la Piglet 8134 de la 31-35 DPE, titrul mediu al Grupului 2 a crescut semnificativ. La purceii din Grupa 3 fără vaccinare LPC care au conviețuit cu donatorul de CSFV, titrul mediu a scăzut treptat între 0 și 28 DPE. Pe măsură ce titrul de Piglet 8138 a crescut treptat între 21 și 35 DPE, titrul mediu al Grupului 3 a crescut invers între 31 și 35 DPE. Titrurile medii ale grupelor 4 și 5 au scăzut în timp. În general, profilul anti-TD/96 NA al fiecărui grup a fost paralel cu cel al profilurilor anti-LPC NA, deși media anti-TD/96 NA a fost între 1,3 și 3,7 log2 (aproximativ de 2–12-ori); Figura 5B), care a fost mai mică decât media NA anti-LPC.

Figura 5. NA anti-LPC (A) sau TD/96 (B) în serurile purceilor din fiecare grup în timpul perioadei experimentale. Purceii din Grupa 1 a fost inoculat în mod ironic cu TD/96 la 7 DPE și a servit ca donor de CSFV (adică, invadator primar), cohabitand ulterior cu purceii din Grupurile 2 și 3 de la 7 la 17 DPE. Purceii din grupul 2 au fost vaccinați cu LPC la 0 DPE, iar purceii din grupul 3 nu au fost vaccinați cu LPC. Purceii din Grupele 4 și 5 au conviețuit cu cei din Grupele 2 și, respectiv, 3, de la 17 la 35 DPE.
Timpul de înjumătățire estimat al MDA-urilor derivate din titrurile de anticorpi ale purceilor din Grupa 4 transferați prin colostrul scroafelor vaccinate cu LPC a fost de 10,7 zile (Figura 5A). Această estimare este susținută de febra negativă și semnele clinice (Tabelul 1), viremia negativă, saliva și încărcăturile virale fecale (Figurile 2 și 3) și țesuturile (Tabelul 2; vezi Secțiunea 3.9) și probele de mediu (Tabelul 3). ) din grupa 4 purcei, care au indicat că aceștia nu au fost infectați cu virusul TD/96 în perioada experimentală.
3.9. Imunohistochimie Detectarea semnalelor antigenului CSFV în probele de țesut de necropsie
Semnalele CSFV TD/96 au fost detectate în țesuturile limfoide ale donatorului grupului 1 de CSFV (Figura 6I), ale unui purcel din grupul 2 (Piglet 8134, care avea încărcături de CSFV în sânge care erau la cel mai înalt nivel de 104,9 TCID50). /mL la 24 DPE și care ulterior a scăzut la 101,7 TCID50/mL la 35 DPE), a trei purcei din Grupa 3 și a trei purcei din Grupa 5. Purceii din Grupa 4 nu au fost pozitivi pentru TD/96 (Figura 6J). Semnalele puternice ale CSFV TD/96 au fost distribuite pe scară largă în amigdalele, splina și ganglionii limfatici ai purceilor din Grupurile 1, 3 (cu excepția Purcelui 8138) și 5. Pentru Purcelul 8134 (Grupul 2) cu viremie tranzitorie TD/96 , semnalele TD/96-pozitive împrăștiate au fost localizate mai ales în regiunile parenchimatoase ale amigdalelor, medularei ganglionilor limfatici inghinali și ganglionilor limfatici submaxilari (Figura 6A-D), ceea ce este în concordanță cu rezultatele încărcăturii virale. cuantificarea acestor țesuturi (Tabelul 2). Morfologia și distribuția celulelor TD/96-pozitive au fost puternic macrofagice. În Piglet 8138 (Grupul 3) cu viremie tranzitorie TD/96, numărul și distribuția semnalelor TD/96-pozitive (Figura 6E–H) au fost similare cu cele din Piglet 8134.

Figura 6. Antigenele CSFV din țesuturile limfoide au fost marcate de anticorpul monoclonal 1C7A1. Un ganglion limfatic (A, B) și amigdală (C, D) de la Purcel 8134 (Grupul 2), care a avut viremie tranzitorie TD/96, prezintă semnalul TD/96-pozitiv maro. Un ganglion limfatic (E, F) și amigdală (G, H) de la Purcel 8138 (Grupul 3), care a avut viremie tranzitorie TD/96, prezintă semnalul TD/96-pozitiv maro. Un ganglion limfatic (I) de la Piglet 8150 (Grupul 1) prezintă un semnal TD/96-pozitiv maro difuz în paracortex. Un ganglion limfatic (J) din Piglet 8146 (Grupul 4) a fost negativ pentru TD/96
În Piglet 8134 (Grupul 2) și Piglet 8138 (Grupul 3), ambele cu viremie tranzitorie de nivel scăzut (Figurile 2A și 3A; Tabelul 2), antigenele CSFV erau încă detectabile în macrofagele tisulare ale amigdalelor (Figura 6A-H) , care a demonstrat din nou că amigdalele sunt un țesut ideal pentru diagnosticul CSFV.
4. Discutie
Vaccinarea este crucială pentru prevenirea și controlul CSF în zonele cu LCR endemice. O practică larg aplicată este de a oferi nou-născuților MDA prin colostrul scroafelor vaccinate și apoi de a administra o singură doză de MLV (cum ar fi LPC) când purceii au vârsta cuprinsă între 3 și 6 săptămâni; această procedură a fost utilizată pentru Grupul 2 în studiul de față (Figura 1). Mulți factori, inclusiv calitatea vaccinului, procedurile programului de vaccinare (de exemplu, programe, tipuri și căi) și nivelurile de MDA și starea de sănătate a porcilor (inclusiv variația individuală), pot influența eficacitatea vaccinării cu CSFV, reducând protecția împotriva infecției [14– 16]. În studiul de față, deși purceii din Grupurile 2 și 3 au avut niveluri ridicate de MDA la 1:32–128- ori la 7 DPE (Figura 5A; adică, 0 DP1C cu donatorul de CSFV din Grupul 1; Figura 1), MDA-urile au întârziat progresul infecției, așa cum este indicat de apariția târzie a viremiei la 10 DP1C (Grupurile 2 și 3; Figura 2A). Acest lucru a făcut ca purceii să fie asimptomatici (Tabelul 1), deși unii dintre purcei încă elimină virusul în saliva și fecalele lor (Figura 2B, C). Acești eliminători virali ocazional din Grupul 2 au reprezentat variații individuale în stările de sănătate ale grupului sau răspunsurile imune analizate în acest studiu. Doar MDA-urile pot oferi doar protecție parțială înainte ca replicarea virală să aibă loc în sânge și țesut. Nivelul anti-CSFV TD/96 NA nu a fost convertit pozitiv în urma vaccinării LPC (Figura 5B), chiar și după ce purceii au cohabit cu invadatorul primar din Grupa 1. Acest lucru s-a întâmplat probabil pentru că nivelul MDA a interferat într-adevăr cu eficacitatea MLV și din cauza naturii imunosupresoare a invadatorului CSFV TD/96.

cistanche tubulosa-imbunatateste sistemul imunitar
Titrurile NA și CMI anti-CSFV reprezentate de numărul de celule secretoare de IFN- -specifice CSFV sunt strâns legate de protecția porcilor împotriva infecției cu CSFV [17,22-24]. Purcelul 8134 (Grupul 2), cu niveluri scăzute de NA anti-CSFV și un număr scăzut de celule secretoare de IFN- -specifice CSFV după inocularea cu MLV (Figurile 4 și 5), a prezentat viremie tranzitorie a CSFV și excreție după contactul cu CSFV donator (Figurile 2 și 3). În schimb, ceilalți purcei din grupul 2, cu NA anti-CSFV scăzute, dar cu celule secretoare de IFN- -specifice de CSFV relativ ridicate după inoculare cu MLV, nu au fost infectați cu CSFV, chiar și după conviețuirea cu donatorul de CSFV timp de 10 zile. . În plus, deși Piglet 8138 (Grupul 3) a avut un titru ridicat de NA anti-LPC (de peste 128-ori) fără vaccinare MLV și cu celule secretoare minime de IFN- -specifice pentru CSFV, a prezentat și CSFV tranzitoriu viremie după conviețuirea cu donatorul TD/96, dar a fost liberă de CSFV până la sfârșitul perioadei experimentale. Ceilalți purcei din grupul 3, cu niveluri scăzute de anti-LPC NA (mai mici de 64-ori) și fără vaccinare MLV, au prezentat semne clinice severe asociate cu CSFV, leziuni și încărcături tisulare mari de CSFV, care au dus la deces. O comparație a rezultatelor Grupurilor 2 și 3, care au avut titruri și profiluri anti-CSFV similare (Figura 5), indică faptul că CMI este factorul cheie în clearance-ul și recuperarea virală. Purceii din Grupul 2 au avut mai mult CMI (Figura 4), ceea ce este în concordanță cu scorurile clinice libere (Tabelul 1) și toți parametrii testați (Figura 2, Figura 3 și Figura 6).
În special, în Grupul 2 și în celelalte grupuri, nivelurile CMI nu au crescut semnificativ (și doar la o frecvență mai mică de 0,1% din PBMC) pe parcursul perioadei experimentale (Figura 4), în ciuda purceilor. expunerea constantă la expunerea virală a donatorului de CSFV din Grupul 1 și a purceilor din Grupa 3 de la 7-17 DPE (Figurile 2 și 3). Frecvențele joase ale celulelor secretoare de IFN{10}}reflectează probabil următoarele: (1) natura imunosupresoare a CSFV, (2) interferența MDA și (3) limitarea tehnică a testului pe care l-am efectuat. Prin urmare, determinarea unei ferestre adecvate în care nivelul MDA este suficient de scăzut pentru a evita interferența și totuși suficient de ridicat pentru a oferi protecție inițială și pentru a spori CMI anti-CSFV este esențială pentru îmbunătățirea imunității efectivelor.
Pentru purceii din Grupa 2 tratați cu procedura de vaccinare aplicată pe scară largă, eliminarea ocazională a CSFV în salivă și fecale a avut loc pentru o perioadă scurtă (Figura 2) la încărcături mici de CSFV (Figura 3); astfel, purceii din Grupa 4 (numai cu MDA) au blocat transmiterea CSFV către Grupul 4, după cum indică rezultatele negative pentru CSFV ale probelor de mediu colectate din Camera 2 (Tabelul 3), lipsa febrei și semnele clinice (Tabelul 1). ), și absența salivei și a excreției fecale și a viremiei (Figurile 2 și 3) în timpul conviețuirii. Cu toate acestea, purtătorii asimptomatici de CSFV din grupa 2 ar fi putut reprezenta o răspundere nedetectabilă în domeniu.
Răspunsul imun poate fi indus rapid și constant la purceii SPF vaccinați cu MLV. Răspunsurile imune celulare și umorale ale purceilor vaccinați cu MLV sunt dezvăluite la 5 și, respectiv, 12 zile după vaccinare, cel mai devreme [14–16,22]. Când MLV este utilizat în efectivele comerciale, MDA-urile reduc eficacitatea MLV. În studiul de față, CMI la purceii din Grupa 2 cu niveluri substanțiale de MDA a crescut rapid la 0 DP1C (7 DPE; Figura 4; adică, mult mai rapid decât la porcii SPF fără MDA), deși nici anticorpul, nici CMI nu profilurile s-au schimbat dramatic (Figurile 4 și 5). O astfel de creștere rapidă la 7 DPE (Figura 4) după vaccinarea LPC sugerează că colostrul poate furniza și alte componente imunologice, în plus față de MDA, care induc un răspuns asemănător anamnesticului.
NA anti-CSFV sunt utilizate în mod obișnuit pentru a evalua eficacitatea vaccinului și pentru a verifica infecția cu CSFV în efective. Conform tulpinii CSFV, titrul NA anti-CSFV împotriva tulpinilor omoloage (de exemplu, LPC a genotipului 1.1) este mai mare decât a tulpinilor eterogene (de exemplu, TD/96 a genotipului 2.1) și, în acest studiu, a fost log2 1.3 până la 3,7 (Figura 5A) mai mare decât cea față de tulpina TD/96 (Figura 5B) [14]. O diferență similară de titrul NA a fost observată și la diferite tulpini ale virusului sindromului reproductiv și respirator porc (PRRSV) și SARS-CoV-2 [25,26]. Deoarece MDA sunt un factor de interferență vital pentru eficacitatea MLV, schema optimă de vaccinare pentru inocularea MLV la purcei este atunci când MDA-urile purceilor sunt mai mici de 1:32-ori titrul NA anti-LPC. Prin urmare, timpul optim de vaccinare MLV în studiul de față a fost la 28 DPE, ceea ce este în concordanță cu estimarea noastră că timpul de înjumătățire al MDA a fost de 10,7 zile (Grupul 2; Figura 5A) și similar cu rezultatele analizei anti- Titrurile LPC NA din Grupurile 4 și 5. Paradoxal, nivelul de 32-ori al titrului NA anti-CSFV (aproximativ echivalent cu 1:128-ori al NA anti-LPC) este considerat indicele de protecție pentru Infecția cu CSFV [17]. Majoritatea purceilor din Grupele 4 și 5 au avut mai puțin de 1:32-titruri anti-TD/96 NA de la 7 DPE încolo. Astfel, perioada fereastră în care nivelurile MDA sunt adecvat scăzute pentru a nu interfera cu vaccinarea MLV, dar suficient de ridicate pentru a fi protectoare este îngustă, în timp ce fereastra pentru riscul de infecție cu CSFV este largă. Perioada potrivită pentru vaccinarea MLV poate fi prelungită numai dacă MLV este produs din tulpini omoloage, care sunt de obicei indisponibile în majoritatea zonelor endemice de CSFV.
Imunitatea turmei se corelează negativ cu răspândirea agentului patogen în prevenirea și controlul bolilor. Imunitatea crescută a turmei poate reduce atât susceptibilitatea la infecție, cât și amploarea exprimării patogenului în efectiv [27,28]. Vaccinarea este folosită în mod obișnuit ca un instrument direct și rapid pentru a crește imunitatea turmei. Îmbunătățirea acoperirii imunității efective prin imunizarea cu vaccin pentru a reduce răspândirea agentului patogen s-a demonstrat a fi eficientă pentru controlul PRRSV, circovirusul porcin de tip 2, CSFV, virusul pseudorabic și SARS-CoV-2 [29-36]. În studiile CSFV, administrarea atât a vaccinurilor MLV, cât și a subunității E2 a redus, de asemenea, transmiterea CSFV în efective [14–16,22,32]. În studiul de față, deși câțiva purcei vaccinați cu MLV au prezentat viremie și excreție tranzitorie a CSFV (Grupele 2 și 3; Figurile 2 și 3), inocularea cu MLV nu numai că a oferit o protecție completă porcilor vaccinați, dar a asigurat și că tulpina TD/96 nu a fost transmis de la invadatorul primar (Grupul 1) la grupul invadat secundar (Grupul 4). Prin contrast, TD/96 s-a răspândit de la donatorul de VSC din grupul 1 la grupul 3 (fără vaccinarea MLV) și peste la grupul 5, demonstrând că vaccinarea cu virusul VSC împotriva VSC poate bloca transmiterea VSC, crescând astfel probabilitatea eradicării VSC prin reducerea valorii numărul de reproducere de bază (R0) al agentului patogen [28]. Este necesară o acoperire vaccinală mai extinsă pentru a eradica bolile cu agenți patogeni cu R0 ridicat. R0 al CSFV este asociat cu virulența tulpinii și cu doza de inoculare cu CSFV. Nivelurile de patogen R0 ale dozelor cu inoculare moderată și mare ale unei tulpini moderat virulente și dozei de inoculare scăzută a unei tulpini foarte virulente sunt substanțial mai mari decât cele ale unei doze de inoculare mare a unei tulpini cu virulenta scăzută. tulpina [13]. Aceste rezultate indică faptul că este necesară o mai mare acoperire a imunității de turmă în zonele endemice de LCR cu tulpini moderate sau foarte virulente de CSFV.
Celulele liniei monocite-macrofage sunt celule de tropism CSFV care joacă un rol în transmiterea CSFV [37–39]. În studiul de față, purceii care și-au revenit au fost sănătoși și asimptomatici; cu toate acestea, CSFV se poate infecta și ascunde în mod persistent în țesuturile limfoide (Figura 6), evitând astfel clearance-ul imun; acest lucru sprijină, de asemenea, utilizarea țesuturilor limfoide ca specimene ideale pentru diagnostic. Infecția virală persistentă a fost observată și cu CSFV, virusul imunodeficienței umane de tip 1 și virusul sincițial respirator [40-42]. CSFV are capacitatea de a modifica expresia citokinelor, receptorilor de citokine, chemokinelor, interferonilor și receptorilor de tip toll din macrofage, reflectând natura sa imunosupresoare și aproape inactivitatea profilurilor anticorpului (Figura 5) și CMI (Figura 4) ale anticorpului. porci experimentali, în ciuda expunerii lor continue la expunerea CSFV în saliva și fecalele invadatorilor primari (Grupul 1) și secundari (Grupul 3). Imunoreglarea porcilor după infecția cu CSFV a implicat creșteri ale factorilor proinflamatori (IL-1, IL{-6, IL{-8 și MCF) și antivirali (IFN- și ) [43]. Cu toate acestea, mecanismele evoluate și infecția persistentă cu CSFV rămân neclare.

cistanche beneficii pentru bărbați-întărește sistemul imunitar
5. Concluzii
MDA-urile urmate de vaccinarea MLV pot induce o imunitate suficientă, în special CMI, permițând eliminarea și recuperarea virală. Deși câțiva purcei vaccinați cu MLV au avut viremie tranzitorie de nivel scăzut și excreție virală în salivă și fecale, transmiterea CSFV către terți (Grupul 4) ar putea fi blocată prin vaccinarea MLV, reducând astfel R0 al CSFV. și creșterea posibilității de eradicare a LCR.
Referințe
1. WOAH. Capitolul 15.2: Infecția cu virusul pestei porcine clasice. În Codul Sănătăţii Animalelor Terestre; WOAH: Paris, Franța, 2022.
2. Ganges, L.; Crooke, HR; Bohórquez, JA; Postel, A.; Sakoda, Y.; Becher, P.; Ruggli, N. Virusul pestei porcine clasice: trecutul, prezentul și viitorul. Virus Res. 2020, 289, 198151. [CrossRef] [PubMed]
3. WOAH (World Animal Health Information System). Pesta porcină clasică: starea oficială a bolii. Disponibil online: www.woah. org/en/disease/classical-swine-fever/#ui-id-2 (accesat la 1 septembrie 2022).
4. Sawai, K.; Nishi, T.; Fukai, K.; Kato, T.; Hayama, Y.; Yamamoto, T. Analiza filogenetică și filodinamică a unui focar de virus de pestă porcină clasică în Japonia (2018-2020). Transbound. Emerg. Dis. 2022, 69, 1529–1538. [CrossRef] [PubMed]
5. De Oliveira, LG; Gatto, IRH; Mechler-Dreibi, ML; Almeida, HMS; Sonálio, K.; Storino, GY Realizări și provocări ale eradicării pestei porcine clasice în Brazilia. Viruși 2022, 12, 1327. [CrossRef] [PubMed]
6. Zhu, X.; Liu, M.; Wu, X.; Ma, W.; Zhao, X. Analiza filogenetică a izolatelor virale ale pestei porcine clasice din China. Arc. Virol. 2021, 166, 2255–2261. [CrossRef] [PubMed]
7. Lindenbach, BD; Thiel, HJ; Rice, CM Flaviviridae: Virușii și replicarea lor. În Fields Virology, ed. a 5-a; Knipe, DM, Howley, PM, Griffin, DE, Eds.; Lippincott Williams & Wilkins: Philadelphia, PA, SUA, 2007; p. 1101–1152.
8. Paton, DJ; McGoldrick, A.; Greiser-Wilke, I.; Parchariyanon, S.; Song, JY; Liou, PP; Stadejek, T.; Lowings, JP; Bjorklund, H.; Belak, S. Tiparea genetică a virusului pestei porcine clasice. Veterinar. Microbiol. 2000, 73, 137–157. [CrossRef] [PubMed]
9. Depner, KR; Hinrichs, U.; Bickhardt, K.; Greiser-Wilke, I.; Pohlenz, J.; Moennig, V.; Liess, B. Influența factorilor legați de rasă asupra cursului infecției cu virusul pestei porcine clasice. Veterinar. Rec. 1997, 140, 506–507. [CrossRef]
10. Floegel-Niesmann, G.; Bunzenthal, C.; Fischer, S.; Moennig, V. Virulența izolatelor recente și anterioare ale virusului pestei porcine clasice evaluate prin semnele lor clinice și patologice. J. Vet. Med. Ser. B 2003, 50, 214–220. [CrossRef]
11. Moennig, V.; Floegel-Niesmann, G.; Greiser-Wilke, I. Semne clinice și epidemiologia pestei porcine clasice: o revizuire a noilor cunoștințe. Veterinar. J. 2003, 165, 11–20. [CrossRef]
12. Durand, B.; Davila, S.; Cariolet, R.; Mesplède, A.; Le Potier, MF Compararea estimărilor bazate pe viremie și clinice ale transmiterii în interiorul și între condei a virusului pestei porcine clasice din trei experimente de transmitere. Veterinar. Microbiol. 2009, 135, 196–204. [CrossRef]
13. Weesendorp, E.; Backer, J.; Stegeman, A.; Loeffen, W. Efectul tulpinii și dozei de inoculare a virusului pestei porcine clasice asupra transmiterii în interiorul țarului. Veterinar. Res. 2009, 40, 59. [CrossRef]
14. Huang, YL; Deng, MC; Wang, FI; Huang, CC; Chang, CY Provocările controlului pestei porcine clasice: vaccinuri de viață modificate și subunități E2. Virus Res. 2014, 179, 1–11. [CrossRef] [PubMed]
15. Suradhat, S.; Damrongwatanapokin, S.; Thanawongnuwech, R. Factori critici pentru vaccinarea cu succes împotriva pestei porcine clasice în zonele endemice. Veterinar. Microbiol. 2007, 119, 1–9. [CrossRef] [PubMed]
16. Van Oirschot, JT Vaccinologia pestei porcine clasice: de la laborator la câmp. Veterinar. Microbiol. 2003, 96, 367–384. [CrossRef]
17. Terpstra, C.; Wensvoort, G. Valoarea de protecție a titrurilor de anticorpi neutralizanți induse de vaccin în pesta porcină. Veterinar. Microbiol. 1988, 16, 123–128. [CrossRef]
18. Vandeputte, J.; De asemenea, HL; Ng, FK; Chen, C.; Chai, KK; Liao, GA Adsorbția anticorpilor colostrali împotriva pestei porcine clasice, persistența anticorpilor materni și efectul asupra răspunsului la vaccinare la pui de porci. A.m. J. Vet. Res. 2001, 62, 1805–1811. [CrossRef] [PubMed]
19. Ma, WJ; Chen, QL; Chang, CC Investigarea performanței anticorpilor și a prezenței ARN-ului viral înainte și după vaccinarea tulpinii de vaccin împotriva pestei porcine clasice în fermele de porci din Taiwan. Vet din Taiwan. J. 2010, 36, 45–54.
20. Mittelholzer1, C.; Moser, C.; Tratschin, JD; Hofmann, MA Analiza cineticii de replicare a virusului pestei porcine clasice permite diferențierea tulpinilor foarte virulente de cele avirulente. Veterinar. Microbiol. 2000, 74, 293–308. [CrossRef]
21. Huang, YL; Pang, VF; Pan, CH; Chen, TH; Jong, MH; Huang, TS; Jeng, CR Dezvoltarea unei PCR în timp real multiplex cu transcripție inversă pentru detectarea și genotiparea virusului pestei porcine clasice. J. Virol. Metode 2009, 160, 111–118. [CrossRef]
22. Huang, YL; Meyer, D.; Postel, A.; Tsai, KJ; Liu, HM; Yang, CH; Huang, YC; Berkley, N.; Deng, MC; Wang, FI; et al. Identificarea unui epitop conformațional comun pe glicoproteina E2 a virusului pestei porcine clasice și a virusului bolii de frontieră. Viruși 2021, 13, 1655. [CrossRef]
23. Graham, SP; Everett, HE; Haines, FJ; Johns, HL; Sosan, OA; Salguero, FJ; Clifford, DJ; Steinbach, F.; Drew, TW; Crooke, H. Provocarea porcilor cu virusurile pestei porcine clasice după vaccinarea cu tulpina C dezvăluie o protecție remarcabil de rapidă și informații despre imunitatea timpurie. PLoS ONE 2012, 7, e29310. [CrossRef]
24. Graham, SP; Haines, FJ; Johns, HL; Sosan, O.; Rocca, SAL; Lampă, B.; Rumenapf, T.; Everett, H.; Crooke, H. Caracterizarea răspunsurilor celulelor T care secretă IFN încrucișat induse de vaccin, care se corelează cu protecția rapidă împotriva virusului pestei porcine clasice. Vaccin 2012, 30, 2742–2748. [CrossRef] [PubMed]
25. Suradhat, S.; Intrakamhaeng, M.; Damrongwatanapokin, S. Corelația producției de interferon-gamma specifică virusului și protecția împotriva infecției cu virusul pestei porcine clasice. Veterinar. Imunol. Imunopatol. 2001, 83, 177–189. [CrossRef] [PubMed]
26. Planas, D.; Veyer, D.; Baidaliuk, A.; Staropoli, I.; Guivel-Benhassine, F.; Rajah, MM; Planchais, C.; Porrot, F.; Robillard, N.; Puech, J.; et al. Sensibilitate redusă a variantei delta SARS-CoV-2 la neutralizarea anticorpilor. Natura 2021, 596, 276–280. [CrossRef]
27. Zhang, C.; Hu, J. Vaccinuri cu virusul sindromului respirator și reproductiv porcine: starea curentă și strategiile pentru un vaccin universal. Transbound. Emerg. Dis. 2014, 61, 109–120.
28. Andre, FE; Booy, R.; Bock, HL; Clemens, J.; Datta, SK; John, TJ; Lee, BW; Lolekha, S.; Peltola, H.; Ruff, TA; et al. Vaccinarea reduce foarte mult bolile, dizabilitatea, decesul și inechitatea la nivel mondial. Taur. Organul Mondial al Sănătăţii. 2008, 86, 140–146. [CrossRef] [PubMed]
29. Trandafir, N.; Andraud, M. Utilizarea vaccinurilor pentru a controla răspândirea agentului patogen în populațiile de porci. Manag. Sănătate Porcină 2017, 3, 8. [CrossRef] [PubMed]
30. Andraud, M.; Grasland, B.; Durand, B.; Cariolet, R.; Jestin, A.; Madec, F.; Rose, N. Cuantificarea transmiterii circovirusului porcin de tip 2 (PCV-2) în interiorul și între țarc la porci. Veterinar. Res. 2008, 39, 43. [CrossRef]
31. Trandafir, N.; Andraud, M.; Bigault, L.; Jestin, A.; Grasland, B. Un vaccin comercial pe bază de PCV2 reduce semnificativ transmiterea PCV2b în condiții experimentale. Vaccin 2016, 34, 3738–3745. [CrossRef]
32. Trandafir, N.; Renson, P.; Andraud, M.; Paboeuf, F.; Le Potier, MF; Bourry, O. Vaccinul viu modificat cu virusul reproductiv și respirator porc (PRRSv) reduce transmiterea virusului în condiții experimentale. Vaccin 2015, 33, 2493–2499. [CrossRef]
33. Bouma, A.; De Smit, AJ; De Jong, MCM; De Kluijver, EP; Moormann, RJM Determinarea debutului imunității de turmă indusă de vaccinul subunității E2 împotriva virusului pestei porcine clasice. Vaccin 2000, 18, 1374–1381. [CrossRef]
34. De Smit, AJ; Bouma, A.; Van Gennip, HGP; De Kluijver, EP; Moormann, RJM Virușii de tulpină C himeric (marker) induc protecție clinică împotriva virusului virulent al pestei porcine clasice (CSFV) și reduc transmiterea CSFV între porcii vaccinați. Vaccin 2001, 19, 1467–1476. [CrossRef] [PubMed]
35. Van Nes, A.; Stegeman, JA; De Jong, MCM; Loeffen, WLA; Kimman, TG; Verheijden, JHM Nu există focare majore de virus pseudorabic în efectivele de scroafe bine imunizate. Vaccin 1996, 14, 1042–1044. [CrossRef] [PubMed]
36. Shrestha, NK; Burke, PC; Nowacki, AS; Terpeluk, P.; Gordon, SM Necesitatea vaccinării împotriva bolii coronavirus 2019 (COVID-19) la persoanele care au avut deja COVID-19. Clin. Infecta. Dis. 2022, 75, e662–e671. [CrossRef] [PubMed]
37. Gómez-Villamandos, JC; Ruiz-Villamor, E.; Bautista, MJ; Sánchez, CP; Sánchez-Cordón, PJ; Salguero, FJ; Jover, A. Modificări morfologice și imunohistochimice în macrofagele splenice ale porcilor infectați cu pestă porcină clasică. J. Comp. Pathol. 2001, 125, 98–109. [CrossRef]
38. Sánchez-Cordón, PJ; Romanini, S.; Salguero, FJ; Ruiz-Villamor, E.; Carrasco, L.; Gómez-Villamandos, JC Un studiu histopatologic, imunohistochimic și ultrastructural al intestinului la porcii inoculați cu virusul pestei porcine clasice. Veterinar. Pathol. 2003, 40, 254–262. [CrossRef]
39. Sah, V.; Kumar, A.; Dhar, P.; Upmanyu, V.; Tiwari, Alaska; Wani, SA; Sahu, AR; Kumar, A.; Badasara, SK; Pandey, A.; et al. Semnătura expresiei genelor la nivelul întregului genom în macrofagele infectate cu virusul pestei porcine clasice și PBMC ale porcilor indigeni încrucișați. Gene 2020, 731, 144356. [CrossRef]
40. Coronado, L.; Bohórquez, JA; Muñoz-González, S.; Perez, LJ; Rosell, R.; Fonseca, O.; Delgado, L.; Perera, CL; Frías, MT; Ganges, L. Investigarea infectiilor cronice si persistente de peste porcina clasica in conditii de teren si impactul lor asupra eficacitatii vaccinului. BMC Vet. Res. 2019, 15, 247. [CrossRef]
41. Rivera-Toledo, E.; Gómez, B. Persistența virusului sincițial respirator în macrofage modifică profilul expresiei genelor celulare. Viruși 2012, 4, 3270–3280. [CrossRef]
42. Kruize, Z.; Kootstra, NA Rolul macrofagelor în persistența și patogeneza HIV-1. Față. Microbiol. 2019, 10, 2828. [CrossRef]
43. Borca, MV; Gudmundsdottir, I.; Fernandez-Sainz, IJ; Holinka, LG; Risatti, GR Modele de expresie a genelor celulare la macrofagele porcine infectate cu tulpina Brescia de virusul pestei porcine clasice extrem de virulente. Virus Res. 2008, 138, 89–96. [CrossRef]


