
Izolarea unui extract din microorganismul simbiotic corali moi Salinispora Arenicola care exercită efecte citoprotectoare și anti-îmbătrânire Partea 1
Jul 31, 2023
Abstract: Celulele au dezvoltat un sistem foarte integrat responsabil de stabilitatea proteomului, și anume rețeaua de proteostază (PN). Deoarece pierderea proteostazei este un semn distinctiv al îmbătrânirii și al bolilor legate de vârstă, activarea modulelor PN poate extinde durata sănătății. Aici, prezentăm date despre bioactivitatea unui extract (SA223-S2BM) purificat din tulpina Salinispora arenicola TM223-S2 care a fost izolat din coralul moale Scleronephthya lewinsohni; acest coral a fost colectat la o adâncime de 65 m din ecosistemul mezofotic al Mării Roșii EAPC (sud Eilat, Israel). Tratamentul celulelor umane cu module proteostatice activate de SA223-S2BM a scăzut încărcarea oxidativă și a conferit protecție împotriva stresului oxidativ și genotoxic. În plus, SA223-S2BM a îmbunătățit activitățile proteazomului și lizozomal-catepsinelor la muștele Drosophila și a prezentat efecte de protecție a pielii, așa cum este demonstrat de inhibarea eficientă a enzimelor, elastazei și tirozinazei legate de îmbătrânirea pielii. Sugerăm că extractul de SA223-S2BM constituie o sursă probabil promițătoare pentru prioritizarea moleculelor cu proprietăți anti-îmbătrânire.
Glicozidul cistanchei poate crește, de asemenea, activitatea SOD în țesuturile inimii și hepatice și poate reduce semnificativ conținutul de lipofuscină și MDA din fiecare țesut, eliminând eficient diferiți radicali reactivi de oxigen (OH-, H₂O₂ etc.) și protejând împotriva daunelor cauzate de ADN. prin radicalii OH. Glicozidele feniletanoide Cistanche au o capacitate puternică de captare a radicalilor liberi, o capacitate de reducere mai mare decât vitamina C, îmbunătățește activitatea SOD în suspensia de spermă, reduc conținutul de MDA și au un anumit efect protector asupra funcției membranei spermatozoizilor. Polizaharidele Cistanche pot spori activitatea SOD și GSH-Px în eritrocite și țesuturi pulmonare ale șoarecilor senescenți experimental cauzate de D-galactoză, precum și pot reduce conținutul de MDA și colagen în plămâni și plasmă și pot crește conținutul de elastină, au un bun efect de curățare asupra DPPH, prelungește timpul de hipoxie la șoarecii senescenți, îmbunătățește activitatea SOD în ser și întârzie degenerarea fiziologică a plămânilor la șoarecii senescenți experimental. Cu degenerarea morfologică celulară, experimentele au arătat că Cistanche are o bună capacitate antioxidantă. și are potențialul de a fi un medicament pentru prevenirea și tratarea bolilor de îmbătrânire a pielii. În același timp, echinacozidul din Cistanche are o capacitate semnificativă de a elimina radicalii liberi DPPH și are capacitatea de a elimina speciile reactive de oxigen și de a preveni degradarea colagenului indusă de radicalii liberi și, de asemenea, are un bun efect de reparare asupra daunelor anionice a radicalilor liberi de timină.
Faceți clic pe cistanches herba
【Pentru mai multe informații:george.deng@wecistanche.com / WhatApp:8613632399501】
Cuvinte cheie: îmbătrânire; răspunsuri antioxidante; microorganism marin; rețea de proteostază; Salinispora arenicola
1. Introducere
Îmbătrânirea se caracterizează printr-o scădere dependentă de timp a capacității funcționale și a rezistenței la stres, precum și prin creșterea ratelor de mortalitate și morbiditate [1]. Îmbătrânirea nu este doar un proces pasiv, deoarece este reglementată de evenimente de semnalizare moleculară și celulară conservate evolutiv [2,3]. Organismele sunt provocate în mod constant atât de factorii de stres interni (legați de metabolism) cât și externi (derivați de dietă sau de mediu), care pot duce la acumularea treptată a biomoleculelor deteriorate și în cele din urmă pot compromite homeostazia celulară [4,5]. Proteinele sunt implicate în toate funcțiile celulare esențiale și, prin urmare, homeostazia proteomului (proteostaza) este critică pentru funcționalitatea și supraviețuirea celulară [6].
Integritatea proteomului este menținută de rețeaua de proteostază (PN), care se extinde la toate compartimentele subcelulare și este reglată la nivel celular, tisular și organism pentru a asigura sănătatea și longevitatea organismului [7]. Susținerea proteostazei necesită ca celulele să coordoneze și să regleze funcțiile de sinteză, pliere, sortare, transport și degradare a tuturor polipeptidelor [8,9]. Aceste funcții celulare sunt realizate în mare parte de trei ramuri majore interconectate ale PN, și anume rețeaua de chaperone moleculare, căile proteolitice ubiquitin-proteazoom-(UPP) și autofagie-lizozom-(ALP) [10,11].
Chaperonele moleculare asigură plierea adecvată a proteinelor și menținerea conformațională și, de asemenea, cooperează cu căile de degradare [12]. UPP este principalul loc de control al calității sintezei proteinelor și este implicat în reciclarea proteinelor normale cu durată scurtă de viață și a proteinelor nereparabile pliate sau desfăcute [6], în timp ce ALP este responsabil pentru recunoașterea și îndepărtarea agregatelor proteice și a organelelor deteriorate. [13]. Pierderea proteostazei este un semn distinctiv al îmbătrânirii [14], precum și un factor de risc major pentru multe patologii umane legate de vârstă, inclusiv cancer, diabet, tulburări cardiovasculare și boli neurodegenerative [15]. Prin urmare, activarea PN este considerată o abordare promițătoare pentru a întârzia debutul și/sau progresia îmbătrânirii și a bolilor legate de vârstă [16-18].
Îmbătrânirea pielii este caracterizată prin modificări structurale și funcționale ale (printre altele) componente ale matricei extracelulare, cum ar fi elastina [19]. Elastaza este enzima implicată în degradarea elastinei, având ca rezultat dezvoltarea ridurilor și pierderea elasticității [20]. Tirozinaza este o enzimă cheie în sinteza melaninei, care este responsabilă de pigmentarea (printre altele) a pielii umane [21,22]. Cu toate acestea, activarea excesivă a tirozinazei este asociată cu mai multe afecțiuni ale pielii, cum ar fi hiperpigmentarea și melanomul[22,23]. Prin urmare, inhibarea elastazei și a tirozinazei constituie o abordare proeminentă împotriva îmbătrânirii pielii.
Produsele naturale (NP) au o istorie lungă – bine documentată, înainte de nașterea științei și tehnologiei moderne, în diferite culturi – de tratare a bolilor umane [24–26]. Astfel, NP-urile pot servi ca materiale de pornire foarte îmbogățite și schele pentru dezvoltarea medicamentelor; într-adevăr, peste jumătate din toate medicamentele sunt fie NP, derivate din NP, fie inspirate de NP [27-29]. Lumea marine, care adăpostește cea mai mare biodiversitate, este în mare parte neexplorată și, prin urmare, poate fi cea mai vastă resursă pentru a descoperi noi NP [30]. Printre organismele care trăiesc în mediile marine, coralii moi sunt furnizori promițători de NP bioactive și sunt cunoscuți că găzduiesc multe microorganisme diverse [31,32].
Având în vedere aceste fapte, în prezent efectuăm un screening extins de mare debit al NP-urilor pentru a identifica molecule bioactive care ar putea întârzia senescența celulară și/sau îmbătrânirea in vivo. În studiul prezentat aici, am examinat un extract metanolic, și anume SA223-S2BM, din tulpina Salinispora arenicola (S. arenicola) TM223-S2 prin aplicarea de teste in vitro, precum și pe bază de celule. și abordări bio-ghidate in vivo. Tulpina S. arenicola TM223-S2 a fost izolată din coralul moale Scleronephthya lewinsohni (S. Levinson) (numit inițial ca Scleronephthya lewinsohni de către Verseveldt și Benayahu, 1978), care a fost obținut în mod durabil din ecosistemul mezofotic al Mării Roșii EAPC ( sudul Eilat, Israel) la o adâncime de 65 m. Extractul metanolic SA223-S2BM a activat mecanismele de citoprotecție atât în celulele umane, cât și în muștele Drosophila melanogaster (D. melanogaster) și a exercitat proprietăți de protecție a pielii in vitro. Prin urmare, extractul SA223-S2BM ar putea fi sursa pentru identificarea probabilă a moleculelor cu potențiale proprietăți citoprotectoare și anti-îmbătrânire.
2. Materiale și metode
2.1. Originea și izolarea extractului SA223-S2BM
2.1.1. Colecția Coral
Coralul moale S. Levinson a fost colectat de un ROV H800 (ECA Robotics) operat de Sam Rothberg R/V al Institutului Interuniversitar de Științe Marine din Eilat (IUI). In situ, fotografia a fost realizată de o cameră alb-negru cu lumină scăzută VS300 (ECA Robotics) și o cameră 1CAM Alpha HD (SubC Imaging). Probele au fost obținute de brațul ROV din reciful mezofotic din Eilat, în largul terminalului debarcaderului petrolier (29◦300 47,0900 N, 34◦{350 56,7100 E), la 65 m, pe 7 martie. 2017. Locul de colectare se caracterizează printr-o pantă moderată cu pete stâncoase înconjurate de un fund nisipos. La colectare, materialul a fost imediat congelat la -80 ◦C. Un exemplar de voucher a fost păstrat în etanol 70% pentru identificarea taxonomică și depus la Muzeul Steinhardt de Istorie Naturală, Universitatea din Tel Aviv (SMNHTAU_Co{_37500).
2.1.2. Izolarea și identificarea tulpinilor
S. arenicola TM223-S2 a fost izolat dintr-o probă de 1 ml de S. Levinson. Proba de coral moale colectată a fost măcinată în apă de mare sterilă și încălzită la 50 ◦ C timp de 1 oră. Suspensia rezultată a fost diluată în serie, placată pe mediu de agar de izolare selectivă și incubată la 28 °C timp de cel puțin 6 săptămâni. Tulpina Salinispora a fost izolată, iar colonia a fost purificată pe agar bulion marin (MBA) (Difco, Thermo Fisher Scientific Inc., Waltham, MA, SUA) și conservată la -20 ◦ C într-o soluție de glicerol 10%.
2.1.3. Investigarea Filogeniei
Analiza filogenică a fost efectuată utilizând un fragment al genei ARNr 16S amplificat din ADN-ul genomic al S. arenicola TM223-S2. ADN-ul genomic al tulpinii TM223-S2 a fost izolat folosind un kit de sânge și țesut DNeasy (Qiagen), conform instrucțiunilor producătorului. Fragmentul de ARN ribozomal 16S a fost amplificat prin PCR folosind primeri 16S F 27, AGA GTT TGA TC(AC) TGG CTC AG (Tm: 56,3 ◦C) și 16S R 1492, TAC GG(CT) TAC CTT GTT ACG ACT T ( Tm: 57,5 ◦C). Ampliconii au fost secvenționați prin secvențierea Sanger și secvențele au fost aliniate cu baza de date de ARN ribozomal 16S a proiectului Targeted Loci al NCBI folosind MUSCLE. Alinierea a fost inspectată manual și golurile au fost îndepărtate. Istoricul evolutiv a fost dedus prin utilizarea metodei probabilității maxime și a modelului Tamura-Nei [33] cu 1000 de replici. Arborele inițial pentru căutarea euristică a fost obținut automat prin aplicarea algoritmilor vecin-join și BioNJ la o matrice de distanțe perechi estimate folosind abordarea maximă de probabilitate compusă (MCL) și apoi selectând topologia cu o valoare log-probabilității superioară. Analizele evolutive au fost efectuate în MEGA X versiunea 10.1.7 [34].
2.1.4. Conditii de cultivare
Sporii S. arenicola TM223-S2 au fost conservați la -20 ◦C în glicerol 10%. Înainte de cultivare, tulpina a fost reînviată timp de 15 zile pe o placă Petri de 15 cm care conținea MB (Difco, Thermo Fisher Scientific Inc., Waltham, MA, SUA) suplimentată cu 2% Agar (Difco, Thermo Fisher Scientific Inc., Waltham, MA). , STATELE UNITE ALE AMERICII). Pe suprafața plăcii a fost turnată apă de mare sterilă (4 × 10 ml), iar sporii și miceliul au fost recuperați din placă prin zgârierea ușoară a suprafeței cu un bisturiu pentru a genera inocul. Fermentarea în stare lichidă (LSF) a fost efectuată într-un balon Erlenmeyer de 2 L timp de 20 de zile la 28 ◦ C și agitare la 130 rpm. Rășina Amberlite XAD16 (30 g/L) (Amberlite XAD16HP N, Certis, Lenntech, Delfgauw, Țările de Jos) a fost adăugată înainte de sterilizare pentru a permite captarea in situ a metaboliților microbieni. Cinci mililitri de inocul au fost utilizați pentru a inocula 1 L pe MB care conține 30 g de rășină Amberlite XAD16. Fermentarea în stare de agar cuplată cu extracția în fază solidă (SPE) [35] a fost efectuată pe mediu MB (Difco, Thermo Fisher Scientific Inc., Waltham, MA, SUA) suplimentat cu 2% Agar (Difco, Thermo Fisher Scientific Inc., Waltham, MA, SUA) peste 20 de zile la 28 ◦C. Amberlite XAD16 sterilizat (35 g) amestecat cu 35 mL de inocul a fost răspândit omogen pe suprafața unei plăci Petri de 1 MB agar agar (25 cm × 25 cm).
Pentru LSF, rășina XAD16 a fost separată din cultura bulionului prin filtrare și spălată cu apă înainte de a fi eluată cu acetat de etil (100 ml) și apoi cu metanol (100 ml). Eluaţii au fost concentraţi la sec în vid şi solubilizaţi în DMSO la o concentraţie de 10 mg/mL. Extractul rezultat, SA223-S2LAE (extras folosind acetat de etil), a fost utilizat pentru evaluări biologice.
Pentru SPE, rășina XAD16 a fost recuperată prin zgârierea cu atenție a suprafeței plăcii de agar. Răşina recuperată a fost spălată cu apă pentru a elimina biomasa înainte de a fi eluată cu acetat de etil (100 ml) şi apoi cu metanol (100 ml). Eluaţii au fost concentraţi la sec în vid şi solubilizaţi în DMSO la o concentraţie de 10 mg/mL. Extractele rezultate, SA223-S2BAE (extras folosind acetat de etil) și SA223-S2BM (extras folosind metanol), au fost utilizate pentru evaluări biologice.
2.2. Activități inhibitoare ale elastazei și tirozinazei
Activitatea inhibitoare a elastazei a extractului prioritar a fost evaluată folosind elastaza din pancreasul porcin (PPE) tip IV (Merck KGaA, Darmstadt, Germania) și substratul N-succinil-Ala-Ala-Ala-p-nitroanilida (Merck KGaA, Darmstadt, Germania), așa cum a fost descris anterior [36]. Capacitatea extractului de a inhiba acțiunea catalitică a tirozinazei în oxidarea L-DOPA la dopacrom a fost determinată, așa cum sa raportat anterior [37].
2.3. Liniile celulare, condițiile culturii celulare și analiza viabilității celulare
Fibroblastele prepuțului uman (celule BJ) au fost achiziționate de la American Tissue Culture Collection (ATCC), în timp ce keratinocitele umane imortalizate (celule HaCaT) au fost obținute de la Elabscience, Inc. Ambele linii celulare au fost cultivate în mediul Dulbecco Modified Eagle's Medium (DMEM) (Thermo Fisher). Scientific Inc., Waltham, MA, SUA) a fost suplimentată cu 10% (v/v) ser fetal bovin (FBS) și 1% (v/v) aminoacizi neesențiali și au fost menținute în condiții de 5% CO2, 95% umiditate și 37 ◦C. În toate procedurile experimentale aplicate, celulele au fost subcultivate folosind o soluție de tripsină/EDTA (Thermo Fisher Scientific Inc., Waltham, MA, SUA). Efectul extractului SA223-S2BM asupra viabilității celulare a fost estimat folosind testul MTT, așa cum a fost raportat anterior [38]. Tratamentul celular cu peroxid de hidrogen (H2O2) și doxorubicină (DXR) a fost efectuat așa cum este descris în legendele figurilor; H2O2 și DXR au fost obținute de la Merck KGaA (Darmstadt, Germania).
2.4. Testul liniilor de Drosophila și longevității
În acest studiu, am folosit tulpina Drosophila w1118 achiziționată de la Bloomington Drosophila Stock Center (Bloomington, IN, SUA). Muștele au fost menținute la 25 ◦ C și 60% umiditate pe un ciclu de 12 ore de lumină: 12 ore de întuneric. În toate experimentele prezentate, au fost analizate numai țesuturile somatice (cap și torace) ale muștelor, deoarece țesuturile de reproducere prezintă o reglare distinctă a mecanismelor proteostatice și a ratelor de îmbătrânire în comparație cu țesuturile somatice [39].
Longevitatea muștelor a fost testată așa cum s-a descris anterior [40] utilizând muște femele și masculi (număr egal pe sex) care au fost cultivate în flacoane care conțineau (sau nu) extractul studiat. Muștele au fost transferate în flacoane cu alimente proaspete la fiecare două zile, iar decesele au fost înregistrate zilnic. Pentru curbele de supraviețuire și analiza statistică s-au folosit procedura Kaplan-Meier și testul log-rank (Mantel-Cox); semnificația a fost acceptată la p < 0,05.
2.5. Măsurarea speciilor reactive de oxigen (ROS)
Celulele sau țesuturile muștelor au fost incubate cu colorantul CM-H2DCFDA (Thermo Fisher Scientific Inc., Waltham, MA, SUA) la o concentrație de 10 µM în PBS timp de 30 de minute la întuneric (37 ◦C și 25 ◦C, respectiv). După îndepărtarea colorantului, celulele sau țesuturile muștelor au fost incubate cu PBS timp de 15 minute la întuneric (37 °C și, respectiv, 25 °C), lizate în tampon de liză [150 mM NaCl, 1% (v/v) NP{{{ 11}}, 50 mM Tris, pH 8,0] și apoi centrifugat la 14,000 g timp de 15 min (4 ◦C). Ulterior, conținutul de proteine a fost măsurat cu testul Bradford (Bio-Rad Laboratories, Inc., Hercules, CA, SUA), iar fluorescența produsă a fost măsurată într-un cititor de microplăci multimod Spark® (Tecan Trading AG, Männedorf, Elveția) la excitare. și lungimi de undă de emisie de 490 și, respectiv, 540 nm. Peroxidul de hidrogen (H2O2) a fost folosit ca un control pozitiv, deoarece este larg cunoscut că provoacă daune oxidative/stres [41].
2.6. Extracția ARN, sinteza cADN-ului și analiza cantitativă PCR în timp real (Q-RT-PCR)
ARN-ul total a fost extras din celule folosind RNAiso plus (Takara Bio Inc., Shiga, Japonia) și cuantificat cu un spectrofotometru BioSpec-nano (Shimadzu Inc., Kyoto, Japonia). Ulterior, 1 pg ARN a fost convertit în cADN utilizând kitul FastGene Scriptase II cDNA (NIPPON Genetics, Düren, Germania). Pentru a efectua analize PCR cantitative în timp real, au fost utilizate 5x HOT FIREPol® EvaGreen® qPCR Supermix (Solis BioDyne, Tartu, Estonia) și PikoRealTM Real-Time PCR System (Thermo Fisher Scientific Inc., Waltham, MA, SUA). Primerii specifici pentru genele umane studiate au fost cei descriși mai înainte [42]. Gena HMBS a fost utilizată ca normalizator.
2.7. Analiza imunoblotting și măsurarea activității proteazomului și catepsinelor
Studiile de imunoblotting au fost efectuate așa cum a fost descris anterior [43]. Anticorpii primari și secundari conjugați cu peroxidază de hrean au fost aplicați timp de 1 oră la temperatura camerei și s-au dezvoltat imunoblot folosind un kit de reactiv de chemiluminiscență îmbunătățit (ClarityTM Western ECL Substrate, Bio-Rad Laboratories, Inc., Hercules, CA, SUA). Cuantificarea imunobloturilor a fost efectuată prin scanare densitometrie și software-ul ImageJ [44].
Activitățile enzimatice ale proteazomului și catepsinelor din celule sau țesuturile muștelor au fost măsurate la un sistem de fluorometru VersaFluor™ (Bio-Rad Laboratories, Inc., Hercules, CA, SUA) folosind Suc-LLVY-AMC (activitate asemănătoare chimotripsinei, CT-L) și, respectiv, fluoropeptidele Z-FR-AMC (Enzo Life Sciences, Inc., Farmingdale, NY, SUA), așa cum a fost descris anterior [42,45,46]. 6-bromoindirubin-30 -oxima (6BIO) a fost utilizată ca martor pozitiv, deoarece se știe că activează UPP atât în celulele umane, cât și în muștele Drosophila [42,47]; medicamentul Rapamicina, a fost utilizat ca control pozitiv pentru ALP și inducerea catepsinelor [48].
2.8. Anticorpi utilizați
Anticorpi primari împotriva subunității proteazomului 5 (sc-55009), NQO1 (sc-16464), Beclin 1 (BECN1) (sc{-11427), Clusterin (CLU) (sc{{7} }), HSP27 (sc-13132), HSP70 (sc-59570) și GAPDH (sc{-25778), precum și anticorpii secundari conjugați cu peroxidază de hrean, au fost achiziționați de la Santa Cruz Biotechnology, Inc. (Dallas, TX, SUA). Anticorpii primari împotriva 53BP1 (4937), fosfo-histone H2A.XSer139 (H2A.X) (9718) și fosfor-p53Ser15 (9286) au fost obținuți de la Cell Signaling Technology, Inc. (Danvers, MA, SUA). Anticorpul împotriva SQSTM1/p62 (BML-PW9860) a fost cumpărat de la Enzo Life Science, Inc. (Farmingdale, NY, SUA).
2.9. Analize statistice
Experimentele au fost efectuate cel puțin în duplicat. MS Excel a fost folosit pentru analizele statistice. Semnificația statistică a fost evaluată folosind testul t Student (testul t). Punctele de date corespund cu media experimentelor independente, iar barele de eroare denotă abaterea standard (SD); semnificația la p < 0.05 sau p < 0,01 este indicată în grafice prin unul sau, respectiv, două asteriscuri.

3. Rezultate
3.1. Identificarea actinomicetului asociat cu coralul moale S. Levinson
Tulpina microbiană vizată a fost izolată din coralul S. Levinson, care este un coral moale endemic la Marea Roșie. Coloniile acestui coral se găsesc de obicei în situri adânci, atât în ecosistemele de recif de corali mezofotic superior (30–60 m) cât și în ecosistemele de recif de corali mezofotic inferior (60–105 m) [49]. Mai mult, este un coral moale azooxantelat care își obține cerințele energetice prin hrănire prin filtrare și, prin urmare, se găsește în habitate expuse curenților puternici de apă.
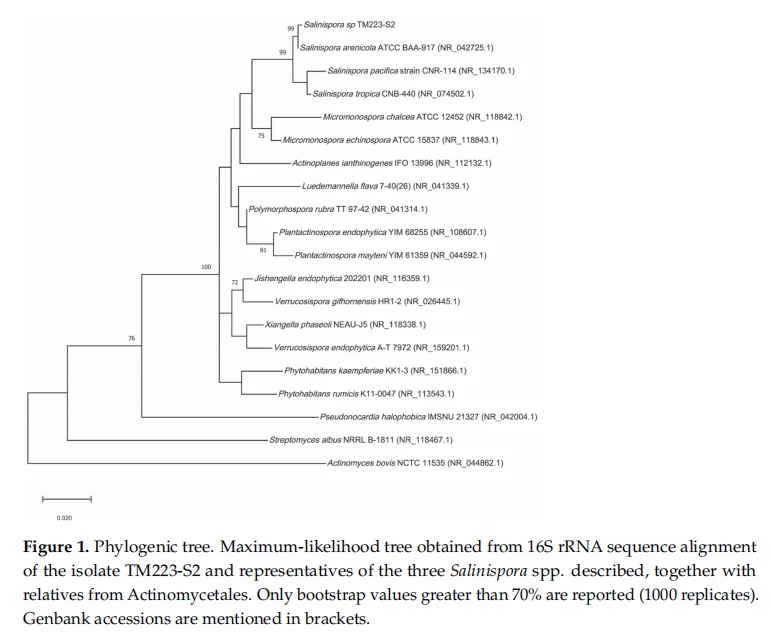
Din analiza filogenetică bazată pe secvența ARNr 16S, s-a descoperit că izolatul TM223-S2 aparține genului Salinispora (Figura 1).
Deoarece S. arenicola poate fi distins de S. Pacifica și S. tropica pe baza secvenței de ARNr 16S [50], am numit acest izolat S. arenicola TM223-S2 cu un număr de acces Genbank MW446171. Tulpina a fost cultivată așa cum este raportat în Secțiunea Materiale și Metode și extrasă respectiv cu acetat de etil și metanol. Investigația biologică preliminară a indicat că extractul din cultura lichidă, SA223-S2BAE și extractul de acetat de etil din cultura solidă, SA223-S2LAE, au fost lipsite de orice activitate biologică semnificativă (Figura S1). Prin urmare, în acest studiu a fost utilizat numai extractul metanolic din cultura solidă asociată cu extracția în fază solidă, SA223-S2BM.
3.2. Extractul SA223-S2BM nu prezintă toxicitate în celulele umane și activează componentele cheie ale PN
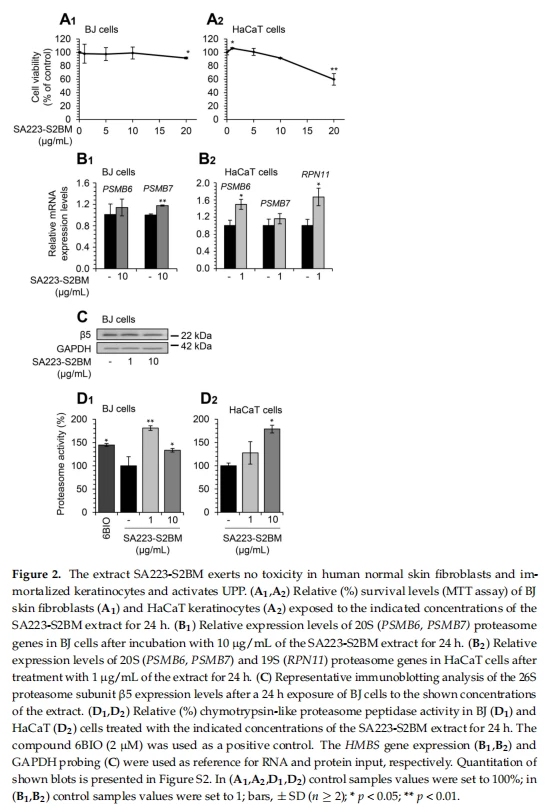
În primul rând, am examinat efectul SA223-S2BM asupra viabilității fibroblastelor BJ ale pielii normale și a keratinocitelor HaCaT imortalizate de om prin efectuarea testului de toxicitate MTT. În acest scop, celulele au fost incubate timp de 24 de ore cu concentrații crescânde ale extractului și, așa cum se arată în Figura 2A1, A2, extractul nu exercită un efect citotoxic asupra niciunei dintre cele două linii celulare examinate la concentrații de până la 10 µg/mL. ; la concentrații mai mari (peste 10 µg/mL), extractul reduce viabilitatea celulară mai ales în celulele HaCaT.
Am studiat apoi efectul extractului asupra căilor celulare, care asigură stabilitatea proteomului celulei. Am observat că expunerea pe termen scurt (24 ore) a fibroblastelor BJ la extractul studiat a indus în mod semnificativ expresia genei proteazomului PSMB7 (la o concentrație de 10 µg/mL), în timp ce, în paralel, a avut tendința de a crește expresia Gena PSMB6 la aceeași concentrație (Figura 2B1). În plus, extractul a indus expresia genei proteazomului 20S, PSMB6, și a genei proteazomului 19S, RPN11 la o concentrație de 1 ug/mL în celulele HaCaT (Figura 2B2). În plus, tratamentul fibroblastelor BJ cu extract timp de 24 de ore a condus la o inducere ușoară a nivelurilor de expresie ale subunității proteazomului 20S5 la concentrația de 1 pg/mL (Figura 2C). În sprijinul constatărilor noastre, expunerea la extract a crescut semnificativ activitatea proteazomului asemănător chimotripsinei atât în fibroblastele BJ, cât și în keratinocitele HaCaT după incubare de 24 de ore (Figura 2D1, D2); rezultatele diferite ale concentrațiilor examinate ale extractului dintre celulele BJ și HaCaT pot fi atribuite efectelor specifice tipului de celule.
În plus, analizele de expresie Q-RT-PCR au arătat că tratamentul fibroblastelor BJ cu extract timp de 24 de ore a indus nivelurile de expresie ale genelor asociate ALP, denumite CTSB, CTSL, CTSD și SQSTM1, la o concentrație de 10 µg/mL ( Figura 3A1). În plus, am observat că expunerea celulelor HaCaT la extract timp de 24 de ore a condus la inducerea nivelurilor de expresie ale genelor implicate în funcționalitatea ALP (CTSB, CTSL, CTSD și SQSTM1) (Figura 3A2).
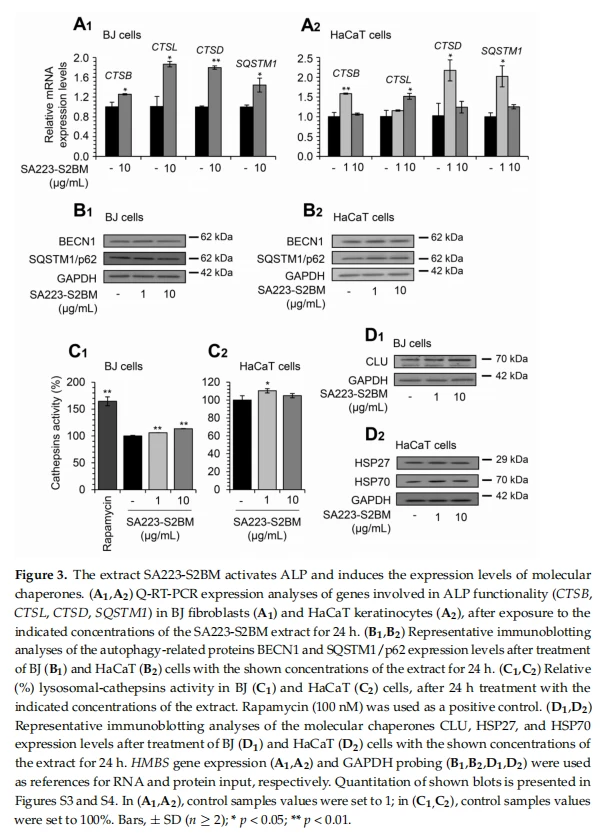
În conformitate cu aceste constatări, am remarcat reglarea în creștere a proteinelor legate de autofagie BECN1 și SQSTM1/p62 după expunerea fibroblastelor BJ la extract la o concentrație de 1 µg/mL (Figura 3B1); niveluri crescute de expresie ale proteinelor BECN1 și SQSTM1/p62 au fost, de asemenea, observate în keratinocitele HaCaT la ambele concentrații studiate (Figura 3B2). În conformitate, am constatat că extractul a îmbunătățit activitatea enzimatică a catepsinelor lizozomale atât în celulele BJ, cât și în celulele HaCaT (Figura 3C1, C2); din nou, rezultatele diferite ale concentrațiilor examinate ale extractului dintre celulele BJ și HaCaT pot fi atribuite efectelor specifice tipului de celule.
În plus, am examinat efectul extractului asupra nivelurilor de expresie ale chaperonilor moleculari cheie. Astfel, analizele de imunoblotting au arătat că extractul a indus nivelurile de expresie ale chaperonelor moleculare CLU (la ambele concentrații studiate) în celulele BJ (Figura 3D1), precum și ale HSP27 (1 µg/mL) și HSP70 (la ambele concentrații studiate) în celulele HaCaT (Figura 3D2).
【Pentru mai multe informații:george.deng@wecistanche.com / WhatApp:8613632399501】