
Partea 2: Compuși bioactivi din Ephedra Fragilis: optimizarea extracției, caracterizarea chimică, activitățile antioxidante și antiglicație
Mar 26, 2022
Pentru mai multe informatii. a lua legaturatina.xiang@wecistanche.com
2.7.Activitate antiglicaţie
2.7.1.Analiza UV-Vizibil
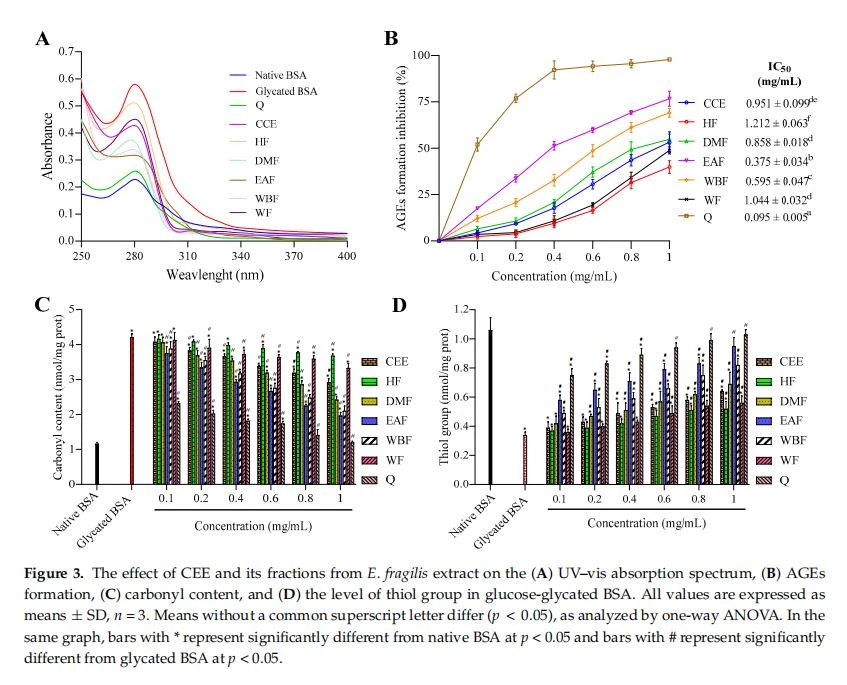
Spectrul UV-vis este o tehnică rapidă, consistentă și simplă folosită în mod obișnuit pentru a detecta modificările conformaționale ale proteinelor și formarea complexă. Spectrele de absorbție ale BSA nativ și glicat au fost incubate timp de 15 zile în prezența sau absența CEE/fracțiilor, precum șiquercetină(control pozitiv) sunt prezentate în Figura 3A.
Sa demonstrat în mod clar că BSA nativ prezintă un vârf caracteristic la 入2s0 nm, care se datorează în principal aminoacizilor aromatici, inclusiv tirozină, triptofan și fenilalanina [47].
La modificarea cu glucoză, absorbanța la λ280 nm a fost cu 60,57% mai hipercromă decât BSA nativă. Intensitatea crescută de absorbție la 入2s0 nm poate fi atribuită desfășurării induse de glicație a helixului proteic, care poate afecta funcția sa fiziologică normală.
Treatment with CEE/fractions reduced significantly the absorbance at入2so nm compared to glycated BSA, and this reduction varied markedly between fractions according to the solvent polarity. Overall, descending antiglycation activity was portrayed as EAF>WBF>DMF>CCE>WF>HE, care au fost 1,82,1,71,1,57,1,35,1,28 și de 1,13-ori mai mici decât BSA glicat. Cu toate acestea, această activitate a fost semnificativ mai mică decât cea aquercetinăutilizat ca martor pozitiv (de 2,24-ori mai mic decât BSA glicat). Deci, se poate concluziona clar din studiile de absorbție că EAF din E.fragilis posedă un efect protector împotriva desfășurării BSA indusă de glicația proteinelor.
2.7.2. Inhibarea glicației proteinelor în modelul BSA-Glu
AGE-urile sunt un grup eterogen de compuși cu caracteristici de fluorescență la λ440 nm atunci când sunt excitați la 入370 nm. Capacitatea CEE și a diferitelor sale fracții din E. fragilis de a inhiba formarea AGE a fost evaluată folosind testul BSA-glucoză, iar rezultatele sunt prezentate în Figura 3B.
După cum se evidențiază din Figura 3B, rata de inhibare a AGE a tuturor probelor testate a prezentat o tendință ascendentă odată cu creșterea concentrațiilor. La 1 mg/ml, CCE, HE, DME EAE, WBF, WF și quercetina au inhibat formarea AGE-urilor cu 53,26,39,83,54,82,76,68,69.09,48,83 și, respectiv, 97,84% după incubare timp de 15 zile. EAF (ICs =0.375±{0.034 mg/mL) a fost cel mai eficient inhibitor al AGE dintre toate fracțiile, urmat de WBF, DMF, CCE și WF cu IC5 0 valori de 0,595 ± {{3{0}}.047, 0,857 ± 0,018, 0,951 ± 0,099 și 1,044± 0,032 mg/ml, respectiv. HF a arătat cea mai slabă activitate, cu valoarea ICso de 1,212±0,063 mg/mL.
Înaltulantiglicaţiepotențialul EAF s-ar putea datora cantității mari de conținuturi fenolice și flavonoide, care au fost descrise ca inhibitori foarte buni ai formării AGE [48]. Antiglicarea mai mare a EAF a extractului de frunze Liquidambar formosana Hance a fost, de asemenea, raportată de Zhang și colab. [31] în comparație cu cea a fracțiilor sale de diclormetan, n-butanol și apă.
După cum este prezentat în Tabelul 5, inhibarea AGE a fost puternic corelată într-o manieră pozitivă atât cu TF(r=0.950;p<0.01)and tp(r=""><0.01)contents, which="" were="" in="" line="" with="" previously="" reported="" studies="" [2,29].="" the="" ages="" inhibition="" was="" also="" correlated="" in="" a="" positive="" way="" to="" dpph",abts,h2o2,reducing="" power,="" tac,andβ-carotene="" assays="" withr="">
r=0,914,r=0,983, r=0,975,r=0,923 și r=0,963 (p<0.01),respectively. these="" reflected="" that="" ages="" inhibition="" is="" linked="" to="" the="" efficiency="" of="" primary="" antioxidants="" [6].="" kaewseejan="" and="" siriamornpun="" [29]="" also="" reported="" that="" phenolic="" compounds="" prevented="" the="" formation="" of="" ages="" through="" its="">eliminarea radicalilor liberișiantioxidantcapacități.
2.7.3. Efecte asupra oxidării proteinelor induse de glicație
Glicația proteinelor (reacția Maillard) este o reacție declanșată prin atașarea covalentă a zahărului reducător la o grupă amino de proteine (în principal reziduuri de lizină și arginină), care duce la producerea unui produs instabil și reversibil, adică baza lui Schiff care suferă în continuare rearanjamentul Amadori. pentru a forma produse mai stabile cu numele de ketamina Amadori. Ulterior, produsele Amadori suferă o reacție enediol pentru a produce proteine carbonilate [48]. Degradarea acestei ketamina ar putea generaradicali liberiprecum radicalii superoxid, care sunt transformați în continuare în HO·prin reacția Fenton, provocând daune oxidative și celulare [49].
Protein oxidation is accompanied by carbonyl protein formation and loss of protein thiols, which are often employed as protein oxidation indicators[50]. As given in Figure 3C, the level of carbonyl content in native BSA was 1.16±0.04 nmol/mg protein, which was increased to more than 3.62-fold (4.21 ± 0.10 nmol/mg protein) upon glycation. The treatment with CEE and its various fractions reduced the level of carbonyl content with the increase of samples concentrations ranging from 0.1 to 1 mg/mL. Furthermore, the inhibition effect of quercetin on the formation of carbonyl proteins was stronger than that of all fractions at every concentration point. When the concentration was 1 mg/mL, CEE, HF, DMF, EAF, WBF, WF, and quercetin decreased the level of carbonyl content by 42.29, 17.37,58.68,73.44,69.17,28.84,and 98.68%, respectively, compared to native BSA. Overall descending, the inhibition of carbonyl content formation was portrayed as Q>EAF>WBF >DMF > CCE> WF >HF.
Efectele CEE/fracțiilor asupra oxidării tiolului proteinelor induse de glicație sunt prezentate în Figura 3D. În BSA nativ, nivelul de tiol proteic a fost de 1,06± 0.{086 nmol/mg de proteină, care a fost scăzut de peste trei ori(0 .34± 0,021 nmol/mg proteină) în proteina glicata. În prezența CEE/fracțiilor, nivelul grupului tiol a fost crescut semnificativ într-o manieră dependentă de doză, variind de la 0,1 la 1 mg/mL. Mai mult, nivelul de tiol proteic a crescut în următoarea ordine: HF<><><><>
Rezultate similare au fost observate la planta Teucrium polium, deoarece EAF a fost mai eficient decât celelalte fracții (eter dietilic și fracțiuni de apă) împotriva oxidării proteinelor mediate de glicație[51]. În studiul lor, Golshahi și Bahramikia [52] au raportat, de asemenea, rezultate similare atunci când au folosit mai mulți solvenți cu polaritate crescândă (eter dietilic și apă) în despicarea unei plante medicinale Trachyspermum copticum. Potrivit acestor autori, EAF are cel mai puternic efect protector împotriva oxidării proteinelor mediate de glicație, urmat la distanță de dietil eter și apă. Acest lucru demonstrează prezența în EAF a unor astfel de compuși care ar putea avea un efect preventiv împotriva daunelor oxidative induse de hiperglicemie la proteine, despre care se crede că are loc în cadrul proceselor de glioxidare prin reducerea formării proteinelor carbonil și protejarea tiolilor proteici de oxidare, așa cum sugerează datele.
2.8.Compuși fenolici identificați în EAF
EAF, care a arătat cea mai mare activitate biologică din alte fracții, a fost selectat pentru identificarea principalilor compuși bioactivi prin RP-HPLC. Un număr total de șase compuși au fost identificați prin compararea timpului lor de retenție cu cei ai standardelor de referință. Compușii fenolici identificați sunt prezentați în Figura 4. Acizii galic, vanilic, cafeic și ferulic au fost identificați ca acizi fenolici, în timp ce doar doi compuși, și anume rutina și quercetina, au fost identificați ca flavonoizi. Conform unui studiu realizat de Soumaya et al. [53], acidul ferulic, luteolina-7-O-glucozida, miricetina și kaempferol 3-O-rutinozida au fost identificate ca prezente în EAF ale părților aeriene ale E.fragilis tunisian, în timp ce prezența rutinei , quercetina, acidul galic și acidul cafeină au fost detectate doar pentru prima dată în studiul nostru. Diferența în compoziția chimică a EAF obținută de la aceeași specie de plante poate diferi în diferite părți ale unei plante, stadiul de dezvoltare a plantei, condițiile de creștere (de exemplu, sol, lumină, temperatură, apă, umiditate și îngrășăminte), timpul de recoltare, sistemul de uscare și procedura de extracție [54]. Rezultatele obținute din profilul de amprentă fitochimică au arătat o bogăție bună de E.fragilis care avea mai mulți compuși fenolici care sunt considerați contribuitori majori la activitățile antioxidante și de captare a radicalilor liberi [55]. În plus, acești compuși sunt cunoscuți pentru capacitățile lor puternice de antiglicație [48]. Mai multe studii au scos la iveală legătura directă dintre activitățile antioxidante ale compușilor fenolici și capacitățile lor antiglicatoare.

2.9. Studiu de andocare moleculară a compușilor identificați
Pentru a vizualiza în mod clar mecanismul detaliat prin care compușii identificați în EAF de E. fragilis se leagă cu BSA și RAGE, am efectuat un studiu de andocare moleculară. Rezultatele de andocare sunt prezentate în Tabelul 6, în timp ce interacțiunile dintre compusul cel mai activ și ținte sunt prezentate în Figura 5. Rezultatele au arătat că quercetina s-a fixat perfect în locul de legare, situat în cavitatea hidrofobă a subdomeniului IB al BSA cu cea mai scăzută energie de legare de { {2}}.7 kcal/mol (Figura 5A). În schimb, s-a obținut o energie de legare mai mică cu acidul ferulic, acidul vanilic, acidul cafeic, acidul gallic și rutina (-6.35,{{7} }.05, -5.84,-5.25 și, respectiv,-4.41 kcal/mol). De obicei, un grad ridicat de negativitate a energiei de legare este mai eficient și compusul ar fi utilizat pentru controlul proceselor de glicație. Din figura 5B, este clar că quercetina formează opt legături de hidrogen cu SER109, ASP111, LEU112, LEU115, ARG144, ARG185 și ARG458 din BSA și patru interacțiuni hidrofobe mediate de aminoacizii alifatici (PRO110, LY141RG, LY144RG) . De asemenea, patru aminoacizi (ASP108, HIS145, LEU189 și LEU462) din jurul quercetinei au interacționat prin forțele lui van der Waal. S-a raportat că lizina și arginina sunt principalele reziduuri de aminoacizi implicate în procesul de glicare [56]. Prin urmare, mascarea quercetinei la reziduurile de lizină și arginină ar putea fi unul dintre posibilele mecanisme ale E. fragilis de a inhiba glicația proteinelor într-un stadiu inițial.
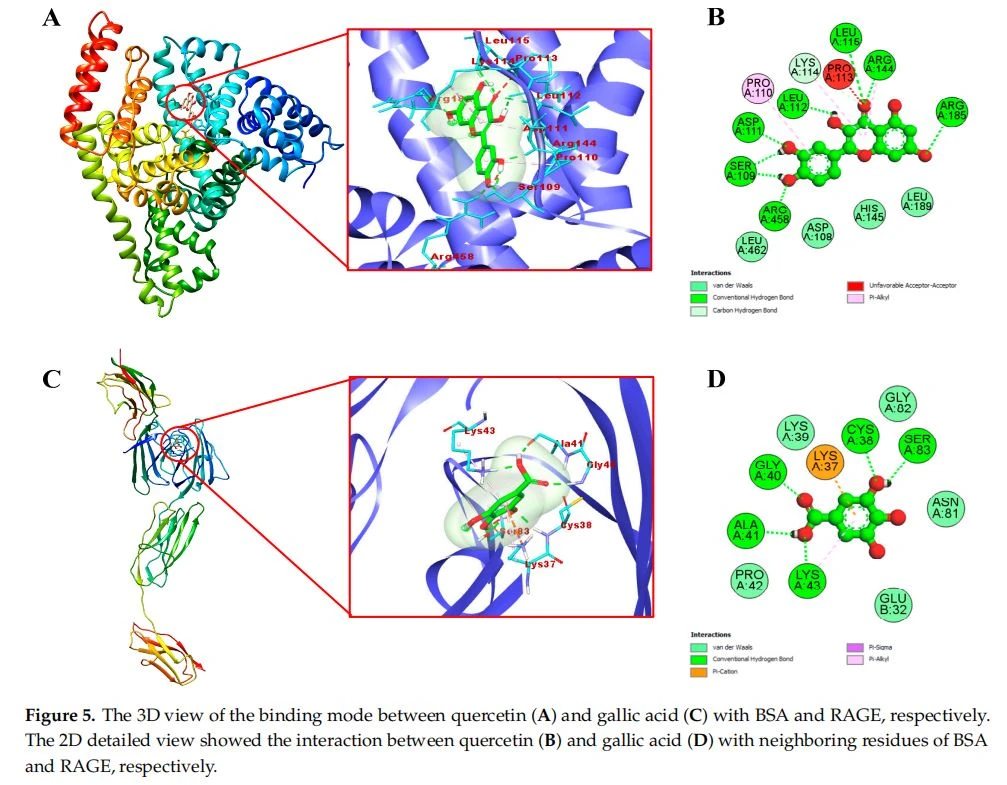

Se știe că implicarea produselor AGE cu RAGE declanșează, prin formarea ROS prin NADPH oxidază și mitocondrii [57], activarea mai multor căi de semnalizare intracelulară (inclusiv JAK/STAT, fosfoinozitol-3 kinaza, rho GTPazele, SAPK/INK). kinazele MAP, p38 și erk1/2 (p44/p42) kinazele MAP) și culminând cu activarea factorilor de transcripție NF-kB [58], conducând la patogeneza diabetului zaharat și a tulburărilor asociate îmbătrânirii [5]. Prin urmare, blocarea interacțiunilor AGE-RAGE poate reprima transducția semnalelor care provoacă stres, care este considerată o strategie terapeutică de inhibare a glicației într-o etapă ulterioară. Rezultatele de andocare cu RAGE, așa cum se arată în tabelul 6, au demonstrat că acidul galic are cel mai mare scor de andocare (G=-6,8 kcal/mol) în comparație cu cele ale acidului vanilic, acidului ferulic, acidului cafeic, quercetinei și rutina (-6,68,-5,94,-5,89,-5,58 și, respectiv, -4,89 kcal/mol). Mai mult, modelarea 2D a acidului galic și a RAGE a arătat că acidul galic a format cinci legături convenționale de hidrogen cu CYS38, GLY40, ALA41, LYS43 și SER83 ale RAGE (Figura 5C, D). De asemenea, LYS37 și LYS43 au fost responsabili pentru interacțiunile hidrofobe ale acidului galic cu RAGE. Cinci aminoacizi din jurul acidului galic (GLU32, LYS39, PRO42, ASN81 și GLY82) au fost atașați de forțele lui van der Waal, stabilizând astfel complexul acid galic-RAGE prin furnizarea unui mediu puternic coeziv. În rezumat, studiul actual a arătat că interacțiunea eficientă a anumitor compuși bioactivi din EAF de E. fragilis cu proteinele țintă ale BSA și RAGE.E.fragilis ar putea fi o sursă de potențiali concurenți ai glucozei și AGE-urilor, care ar putea rezista lor. legarea de BSA și respectiv RAGE și, prin urmare, reducând dezvoltarea ulterioară a stresului oxidativ și a inflamației (Figura 6).

3. Materiale și Metode
3.1. Produse chimice și reactivi
22-azinobis-(3-etilbenzotiazolin-6-acid sulfonic)(ABTS), hidroxi-toluen butilat (BHT), azidă de sodiu, clorhidrat de guanidină, tween-40,1,{ {7}}difenil-2-picrilhidrazil (DPPH), reactiv Folin Ciocalteau, -caroten, acid linoleic, glucoză, 2,4-dinitrofenilhidrazină (DNPH), 5,5'-Ditiobis-({{16} }}Standardele de acid nitrobenzoic) (DTNB), molibdat de amoniu și polifenoli au fost achiziționate de la Sigma-Aldrich (St. Louis, MO, SUA). Peroxidul de hidrogen (H2O2) a fost achiziționat de la Fluka (Basel, Elveția). Clorură de aluminiu (AICl3), carbonat de sodiu (NazCO3), clorură ferică (FeCl3), persulfat de potasiu (K2S2Os), fericianură de potasiu (K3Fe(CN)6), acid sulfuric și toți solvenții au fost obținuți de la Merck Life Science (Darmstadt, Germania). ). Acidul ascorbic și acidul tricloracetic (TCA) au fost obținute de la Scharlau (Barcelona, Spania).
3.2.Materiale vegetale
E. fragilis (părți aeriene) a fost colectat de la Dour Lagfifat, Oulad Teima, Taroudant, Maroc (latitudine, 30 grade 24'0" N; longitudine, 9 grade 12'36" V) în cursul lunii mai 2019. a fost identificat de profesorul Najat ELKHIATI, botanist de la institutul nostru, unde a fost depusă o colecție de exemplare voucher. Planta a fost clătită cu apă distilată, uscată la aer, pudrată într-un blender și păstrată la 49°C până la utilizare.
3.3.Design experimental
3.3.1.Selectarea variabilelor
Se știe că mulți parametri au efecte semnificative asupra extracției compușilor fenolici, cum ar fi tipul de solvent, concentrația de solvent, timpul de extracție și temperatura de extracție [59]. Diferiți solvenți, cum ar fi acetona, metanolul și etanolul sunt potriviți pentru extracția diferiților compuși fenolici [16], dar etanolul a fost selectat ca solvent în acest studiu, datorită siguranței sale comestibile și producției ecologice [60]. Prin urmare, toți factorii, inclusiv concentrația de etanol (X), temperatura de extracție (X2) și timpul de extracție (X3) au fost selectați ca variabile.
3.3.2. BBD pentru optimizarea extracției
A fost dezvoltată o procedură de optimizare folosind RSM pentru a determina efectele factorilor de extracție și pentru a alege condițiile optime de extracție experimentală a compusului fenolic de E. fragilis. A fost întreprinsă o BBD cu trei niveluri și trei factori pentru a investiga impactul a trei factori independenți, inclusiv X1 (concentrația de etanol, procente), X, (temperatura de extracție, grad) și X3 (timp de extracție, h) asupra conținutului de TP și TF. din E, extracte de fragilis [17]. În scopuri de optimizare, au fost efectuate aleatoriu un număr total de 15 încercări, inclusiv trei puncte centrale (Tabelul 1). Pe baza experimentului nostru preliminar cu un singur factor (datele nu sunt afișate), toate variabilele au fost stabilite la trei niveluri (-1,{0 și plus 1), cu X, (40,60 și 80 la sută), X ,(25,42,5 și 60 de grade) și X3(6, 15 și 24 h) (Tabelul 1). Următoarea ecuație polinomială de ordinul doi (Ecuația (1)) a fost utilizată pentru a se potrivi variabilelor de răspuns:

unde Y este răspunsul prezis; o, ; eu si ; sunt coeficienții de regresie pentru termenii de interceptare, liniari, pătratici și, respectiv, de interacțiune; şi X; şi X; sunt variabilele independente (i ≠ j).
3.3.3. Procedura de extracție
Proba de pulbere (10 g) a fost extrasă prin metoda macerării într-o concentrație de etanol proiectată (40-80 procente; 1:10, g/v), la temperaturi diferite (25-60 grade) pentru diferite perioade ({{ {5}} h) pe un incubator cu agitator orbital (160 rpm). Pentru îndepărtarea masei insolubile s-au folosit tifon și hârtie de filtru Whatman nr.1. Filtratul a fost apoi uscat la 40 de grade sub presiune joasă folosind R-3 Rotavapor(Büchi) pentru a se obţine extractul etanolic brut (CEE).
3.4. Fracționarea CEE Obținută în condiții optime
CEE obținut în condiții optime a fost solubilizat în apă distilată (100 mL), iar extracția lichid-lichid a fost efectuată cu diverși solvenți cu polaritate crescătoare pentru a da fracțiune de hexan (HF, 3 x 100 mL), fracțiune de diclormetan (DMF, 3 x 100). ml), fracțiune de acetat de etil (EAF.3 × 100 ml), o fracție de n-butanol saturată în apă (WBF, 3 × 100 ml),
și fracția de apă rămasă (WF). Aceste fracții au fost apoi filtrate și uscate așa cum este descris mai sus, iar randamentul de extracție a fost înregistrat conform ecuației (2):
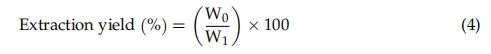
Were Wo și W sunt greutatea CEE/fracțiilor uscate și greutatea inițială a pulberii de E.fragilis; respectiv.
3.5. Analiza fitochimică
Tehnicile spectrofotometrice utilizate pentru evaluarea conținutului fitochimic al extractelor de E. fragilis sunt detaliate în Materiale suplimentare [61,62].
3.6. Activități biologice
Detalii despre testele antioxidante [43,63-67] și activitățile antiglicație [68-70] in vitro au fost date în Materialele suplimentare.
3.7.RP-HPLC Analiza EAF
Analiza compușilor fenolici din EAF a fost efectuată cu Agilent 1100 (Agilent Technologies, Santa Clara, CA, SUA) echipat cu o coloană analitică ZORBAX Eclipse SB-C18 cu fază inversă de 100×4 mm și 3,5 um dimensiunea particulelor [71]. Temperatura coloanei a fost menținută constantă la 48 de grade. Eluția izocratică cu acetonitril, acid acetic 0,1 procente în apă (12:88, v/v) ca fază mobilă și debitul de 1 ml/min au asigurat o bună separare a polifenolilor în EAF de E.fragilis. Volumul injectat a fost de 10 μL și cromatogramele au fost măsurate la 330 nm. Timpii de retenție ai compușilor fenolici în EAF au fost comparați cu cei ai standardelor pur disponibile pentru a le identifica.
3.8. Andocare moleculară
AutoDock Tools (ADT) versiunea 1.5.6 a fost folosită pentru a efectua un studiu de andocare moleculară. Formatul SDF al tuturor compușilor a fost obținut din baza de date PubChem și apoi convertit în fișierul 3Dpdb folosind Open Babel GUI (versiunea 2.4.1). Structurile cristaline ale BSA (PDB ID: 4ORO) și RAGE (PDB ID: 4LP5) au fost colectate de la RCSB Protein Data Bank (PDB). Pe scurt, proteinele au fost mai întâi pregătite pentru andocare prin (i) îndepărtarea tuturor heteroatomilor și a moleculelor de apă, (i) adăugarea de atomi polari de hidrogen și (ii) atribuirea sarcinilor Kollman. Dimensiunea casetei grilei a fost setată la x{{10}},y=126,z=126 și x=80,y{=80.Z{{ 15}} cu centrul grilei de×=8.415,y=21.626,z{=106.57 andx{=37.98,y=-43.581 ,z=9.371 cu o distanță între grilă de 0,375A creată în jurul site-ului de legare a BSA și, respectiv, RAGE. Software-ul de andocare a fost rulat de 100 de ori folosind algoritmul genetic Lamarckian (LGA) pentru a găsi cea mai bună poziție de legare. Ligandul cu cel mai mic scor de energie de legare a fost ales pentru investigații ulterioare. Versiunea software Discovery Studio 2020 (BIOVIA, San Diego, CA, SUA) a fost utilizată pentru vizualizarea rezultatelor de andocare.
3.9. Analize statistice
Versiunea software Design-Expert 119 (Stat-Ease Inc. și Minneapolis, MN, SUA) a fost utilizată pentru a efectua RSM. Analiza datelor a fost efectuată prin analiza unidirecțională a varianței (ANOVA) urmată de testul post-hoc al lui Duncan folosind SPSS 26.0(IBM Co., SUA);p<0.05 was="" considered="" statistically="" significant.="" pearson="" correlation="" analysis="" was="" conducted="" to="" investigate="" correlations="" between="" variables="" and="" their="" significance.="" all="" graphics="" were="" constructed="" using="" graphpad="" prism="" 7.0="" software="" (san="" diego,="" ca,="" usa).="" all="" experiments="" were="" conducted="" in="" triplicate="" and="" presented="" as="" mean="" values="" ±standard="" deviation="">
4. Concluzii
RSM cu un BBD a fost folosit pentru a seta parametrii optimizați pentru extracția compușilor bioactivi din planta medicinală marocană E. fragilis. Concentrația optimă de etanol, temperatura de extracție și timpul de extracție au fost prezise pentru maxim
randamentul de extracție al compușilor fenolici și sa dovedit a fi de 61,93 la sută, 44,43 grade C și, respectiv, 15,84 h. CEE obținute în condiții optime de extracție și diferitele sale fracții au fost analizate pentru conținutul lor de TP și TF, precum șiantioxidantși activități antiglicație. Fracția EAF prezintă cel mai mare conținut de TP și TF și cele mai puternice activități antioxidante în comparație cu alte fracții. De asemenea, evaluarea mai multor biomarkeri, cum ar fi spectrul de absorbție UV-vis, fluorescența AGE-urilor specifice, conținutul de carbonil și grupa tioli liberi, a arătat cel mai mare efect protector al EAF împotriva glicației mediate de glucoză. În plus, a fost observată o relație pozitivă semnificativă între capacitățile antioxidante ale compușilor fenolici și activitățile lor antiglicatoare. Acest lucru indică faptul că compușii fenolici pot fi principalele componente predominante responsabile atât pentru activitățile antioxidante, cât și pentru cele antiglicatoare. Compușii bioactivi din EAF au fost caracterizați prin analiză RP-HPLC și au fost identificați un număr total de șase compuși. Analiza de andocare moleculară in silico a arătat, de asemenea, o interacțiune eficientă între quercetină și acid galic cu BSA și, respectiv, RAGE ca proteine țintă. În mod colectiv, acest studiu sugerează că E.fragilis ar putea fi o sursă potențială de compuși bioactivi naturali cu activități antioxidante și antiglicatoare puternice și ar trebui aplicate în tratamentul și prevenirea îmbătrânirii și a complicațiilor asociate cu glicația. Trebuie efectuate studii suplimentare privind izolarea compușilor bioactivi și screeningul farmacologic (adică, studiul citotoxicității) pentru a explora fitochimia și mecanismele de acțiune ale proprietăților farmacologice ale E. fragilis.
Referințe
1. Martins, N.; Barros, L.; Santos-Buelga, C.; Silva, S.; Henriques, M.; Ferreira, ICFR Decoct, infuzie și extract hidroalcoolic de cimbru cultivat: activități antioxidante și antibacteriene și caracterizare fenolică. Food Chim. 2015, 167, 131–137. [CrossRef]
2. Deetae, P.; Parichanon, P.; Trakunleewatthana, P.; Chanseetis, C.; Lertsiri, S. Proprietăți antioxidante și antiglicare ale ceaiurilor din plante thailandeze în comparație cu ceaiurile convenționale. Food Chim. 2012, 133, 953–959. [CrossRef]
3. Yao, Q.; Liang, Y.; Shao, Y.; Bian, W.; Fu, H.; Xu, J.; Sui, L.; Yao, B.; Li, M. Concentrații avansate de produs final de glicație în fluidul folicular la femeile supuse FIV/ICSI cu un protocol de agonist GnRH. Reprod. Biomed. Online 2018, 36, 20–25. [CrossRef] [PubMed]
4. Grimm, S.; Ott, C.; Hörlacher, M.; Weber, D.; Höhn, A.; Grune, T. Formarea imunoproteazomilor indusă de produs final de glicație avansată: Implicarea RAGE și Jak2/STAT1. Biochim. J. 2012, 448, 127–139. [CrossRef]
5. Meenatchi, P.; Purushothaman, A.; Maneemegalai, S. Proprietăți antioxidante, antiglicatoare și insulinotrofice ale Coccinia Grandis (L.) in vitro: Rol posibil în prevenirea complicațiilor diabetului. J. Tradit. Completa. Med. 2017, 7, 54–64. [CrossRef] [PubMed]
6. Nakagawa, T.; Yokozawa, T.; Terasawa, K.; Shu, S.; Juneja, LR Activitatea de protecție a ceaiului verde împotriva daunelor proteice mediate de radicalii liberi și de glucoză. J. Agric. Food Chim. 2002, 50, 2418–2422. [CrossRef] [PubMed]


