

Perspective structurale și funcționale asupra polimorfismului fibrilelor sinucleinei Partea 2
May 20, 2024
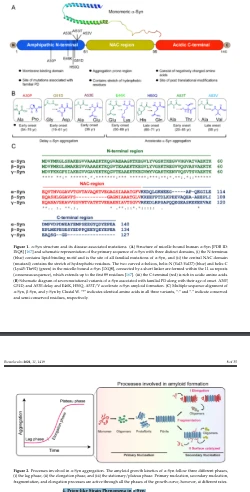
Proteinele -Synuclein (-syn) și -synuclein (-Syn) aparțin și ele familiei sinucleinelor [165] (Figura 1C). -Syn este o proteină cu 134 de aminoacizi, identificată anterior ca omolog uman al fosfoneuroproteinei 14 bovine (PNP14).
Pe măsură ce îmbătrânim, memoria scade treptat. Cu toate acestea, putem îmbunătăți memoria printr-o alimentație bună. Proteina aminoacizilor este unul dintre cei mai importanți nutrienți.
Proteinele aminoacizilor pot crește numărul și conexiunile neuronilor din creier, jucând un rol vital în învățare și memorie. În plus, proteinele aminoacizilor pot promova creșterea și repararea vaselor de sânge din creier și pot crește aportul de oxigen către creier, ajutând astfel la îmbunătățirea capacității cognitive și a memoriei creierului.
Unele alimente bogate în proteine aminoacizi includ pui, carne de vită, pește și ouă. În același timp, unele alimente derivate din plante precum fasolea, semințele de floarea soarelui etc. oferă și proteine bogate în aminoacizi. Putem îmbunătăți memoria mâncând o dietă echilibrată și consumând aminoacizi și proteine adecvate.
În plus, ar trebui să acordăm atenție aportului de cantități adecvate de proteine aminoacizi și să menținem obiceiuri alimentare și stiluri de viață sănătoase. Exercițiile regulate, somnul suficient și reducerea stresului pot contribui la îmbunătățirea dezvoltării și funcționării creierului.
Una peste alta, aminoacizii și proteinele sunt nutrienți importanți pentru îmbunătățirea memoriei. Printr-o dietă rezonabilă și ajustări ale stilului de viață, ne putem ajuta creierul să funcționeze mai bine, să ne îmbunătățim capacitatea de a învăța și de a ne aminti și să avem o viață mai sănătoasă și mai fericită. Se poate observa că trebuie să îmbunătățim memoria, iar Cistanche deserticola poate îmbunătăți semnificativ memoria, deoarece Cistanche deserticola are efecte antioxidante, antiinflamatorii și anti-îmbătrânire, care pot ajuta la reducerea oxidarii și a reacțiilor inflamatorii din creier, protejând astfel sănătatea sistemului nervos. În plus, Cistanche deserticola poate promova și creșterea și repararea celulelor nervoase, sporind astfel conectivitatea și funcția rețelelor neuronale. Aceste efecte pot ajuta la îmbunătățirea memoriei, a învățării și a vitezei de gândire și pot preveni, de asemenea, dezvoltarea disfuncției cognitive și a bolilor neurodegenerative.

Faceți clic pe cunoașteți modalități de îmbunătățire a funcției creierului
Întinderea 11-aminoacizilor (reziduurile 73–83) lipsește din domeniul său NAC (Figura 1C), din cauza căruia nu se poate fibrila [11,176,177]. Anterior, se credea că -Syn este un inhibitor al agregării -Syn și a prevenit neurotoxicitatea acestuia [11,176]. Cu toate acestea, această noțiune s-a schimbat după descoperirea mutațiilor missens în gena -Syn, P123H (familială) și V70M (sporadic), cunoscute că provoacă DLB [178].
Efectele nocive ale acestor mutații au fost demonstrate de studii pe celule și animale [179,180]. Grupul nostru a arătat recent că în condiții fiziologice normale, fibrilizarea și agregarea lui -Syn și mutațiile sale asociate bolii nu au avut loc, dar un micromediu alterat, cum ar fi scăderea pH-ului și/sau prezența heparinei, le-a determinat polimerizarea [181].
-Syn, care împărtășește ~55% omologie de secvență cu -Syn, a fost inițial identificat în afecțiunile maligne ale cancerului de sân codificate de o genă specifică cancerului de sân, BCSG1 [182]. A fost raportat în sistemul nervos central periferic și țesuturile cancerului de sân [182,183]. Se agregează și formează fibrile in vitro [177] și incelule [184], dar este comparativ mai lent decât -Syn [91].
Plierea greșită și fibrilația -Syn este un eveniment major în mai multe tulburări neurodegenerative [185]. Agregatele -Syn pliate greșit sunt amiloidogene, care se acumulează în mod aberant în creier și, ca urmare, pacientul suferă anomalii de mișcare care se agravează în timp.
Agregarea lui -Syn este un fenomen complex și implică conversia monomerilor în structuri bogate în foi- -încrucișate înalt ordonate prin formarea mai multor specii oligomerice solubile pe și în afara căii [185,186]. Formarea amiloidului -Syn este în general monitorizată de colorantul fluorescent cu tioflavină T [187].
Urmează cinetica de creștere ssigmoidală, care constă în (i) faza de întârziere, care implică formarea de nuclei, care în cele din urmă cresc în structura agregată detectabilă în soluție; (ii) faza de alungire, conversia și creșterea ulterioară a speciilor oligomerice în structura fibrilară; și (iii) faza staționară, reprezentând starea de echilibru în care concentrația de monomer și fibrilă atinge echilibrul.
Până la sfârșitul agregării, -Syn se adună în fibrile amiloide lungi atipice, caracterizate în mod normal prin microscopie electronică și tehnici de imagistică microscopică cu forță atomică [9]. Aceste faze de agregare nu pot fi atribuite unui singur eveniment sau proces microscopic. În schimb, toate procesele, adică nuclearea primară, alungirea, nuclearea secundară și fragmentarea, sunt active în toate fazele curbei de creștere, dar cu rate diferite [188,189] (Figura 2).
Aceste viteze de reacție sunt guvernate de constantele vitezei de agregare și de concentrația speciilor care reacţionează la un moment dat [190]. Formarea amiloidului inițiază cu nuclearea primară a speciilor monomerice în soluție și alungirea prin adăugarea de monomer la capetele de creștere ale agregatelor [189]. Cu toate acestea, procesele de nucleare primară sunt de scurtă durată și sunt depășite rapid de procesele de nucleare secundară [191].
Fragmentarea fibrilelor în condiții de agitație (sau chiar în condiții de repaus, în funcție de stabilitatea fibrilelor de amiloid) modifică numărul de capete de creștere și afectează semnificativ cinetica generală de creștere [188,189].
Mai mult, nuclearea secundară prin cataliză de suprafață este, de asemenea, unul dintre contributorii majori la creșterea amiloidului în mai multe sisteme, în special în condiții de repaus [189,190]. Auto-asamblarea și agregarea -Syn este un fenomen complex și implică mai multe procese paralele. Prin urmare, este crucial să înțelegem evenimentele moleculare subiacente pentru a delimita legătura lor fundamentală cu boala umană.
4. Fenomene de tulpină asemănătoare prionilor în -Syn
De la descoperirea lui -Syn ca constituent principal al patologiei corpului Lewy în 1997, accentul principal a fost mutat către delimitarea mecanismului patogen de bază al PD.
Heiko Braak [192] a prezentat un sistem de stadializare al patologiei Lewy în 2003 bazat pe modelele specifice de răspândire -Syn. Conform ipotezei Braak, Lewypathology inițiază din bulbul olfactiv și DMV și apoi se răspândește progresiv în celelalte regiuni ale creierului.
Deși există dovezi experimentale și clinice care susțin ipoteza lui Braak, este incert dacă aceasta este aplicabilă și/sau descrie cu acuratețe progresia PD la toți pacienții. De exemplu, există cazuri în care pacienții nu prezintă patologie Lewy în DMV sau ENS, în timp ce alte regiuni ale creierului sunt grav afectate [193–198].
Chiar și în unele cazuri, nu a fost observată nicio legătură între severitatea patologiei Lewy și simptomele clinice în PD [195]. Prin urmare, se sugerează să se aplice numai ipoteza lui Braak la un subgrup al populației [198] deoarece nu toți pacienții cu PD aderă la sistemul de stadializare propus de Braak [199]. În mod intrigant, rapoartele patologiei Lewy în grefele neuronale fetale după paisprezece ani de transplant în striatul pacientului cu PD au oferit dovada directă a transmiterii de la celulă la celulă și a răspândirii -Synpathology propusă de Braak [200,201].

Studiile care au folosit sisteme in vitro și modele celulare au sugerat ulterior că agregatele -Syn sunt infecțioase, se pot muta de la o celulă la alta și pot genera agregarea omologul lor endogen solubil în celulele primitoare, explicând fenomenul observat în neuronii grefați [18,21,23] . Această transmitere asemănătoare prionilor a agregatului -Syn dintr-o regiune în alta este, de asemenea, implicată la pacienții cu DLB și PDD, ceea ce sugerează că răspândirea patologiei Lewy este proprietatea comună a sinucleinopatiilor -Syn agregatesin [202-205].
Cu toate acestea, caracteristicile clinice și patologice ale acestor sinucleinopatii sunt foarte variabile și eterogene [206,207], [146,208]. S-ar putea întreba de ce, în ciuda faptului că sunt legate de agregarea aceleiași proteine, distribuția patologiei -Syn și manifestarea simptomelor bolii sunt diferite între sinucleinopatii.
Acest lucru ar putea fi explicat prin fenomenul de tulpină asemănătoare prionilor a -Syn, în care aceeași proteină precursoare formează fibrile diferite care au ca rezultat o patologie distinctă.
4.1. Conceptul de tulpini de prioni
Ultimele câteva decenii de cercetare au sugerat că proteinele/peptidele cu diferite structuri și secvențe pot forma o structură comună a amiloidului [209–213]. Aceste proteine/peptide formează amiloizi cu un cadru comun de agregare, adică printr-un mecanism de polimerizare dependent de nucleare [214,215].
Cu toate acestea, fiecare proteină/peptidă poate suferi, de asemenea, o cale de agregare distinctă pentru a forma o structură unică de amiloid. Studiile structurale recente de înaltă rezoluție cu ssNMR și cryo-EM au sugerat într-adevăr că fiecare proteină se împachetează în mod unic și formează structuri diferite pentru pliul încrucișat al foii [56–58,61,216]. Nu numai că, dar, în mod surprinzător, o proteină poate forma mai multe pliuri structurale diferite [40,59].
Astfel, aceste proteine pot adopta diverse conformații din aceeași secvență de aminoacizi, dând naștere la mai multe proteinopatii și, prin urmare, neconfirmând ipoteza unei singure proteine -o structură [217]. De exemplu, tau se pliază diferit în boala Alzheimer și în boala Pick [40,218,219] . Diferite agregate de proteine de legare a ADN-ului TAR (TDP-43) există în creierul subtipurilor Frontotemporal lobardegeneration (FTLD-TDP), prezentând diferențe morfologice între subtipuri [220].
Capacitatea acestei proteine de a plia greșit și de a afișa diversitatea conformațională poate duce la consecințe severe, cum ar fi neurodegenerarea [221]. Acest fenomen al unei proteine care formează diferiți amiloizi asociate cu diferite proprietăți fenotipice este binecunoscut pentru prioni [46,222]. Prionii sunt particule de proteine infecțioase care prezintă eterogenitate conformațională și pot fi transmise de la un individ la altul [223].
O multitudine de dovezi arată diversitatea epidemiologică și clinicopatologică în bolile prionice umane, cum ar fi boala Kuru, sindromul Gerstmann-Straussler-Scheinker și boala Creutzfeldt-Jakob [224], precum și bolile prionice non-umane, cum ar fi encefalopatia spongiformă bovină (BSE) la bovine, scrapie la oi și caprine etc. [225].
Proteina prionică celulară normală (PrPC) suferă conversie de la conformație elicoială la conformație bogată în foaie (PrPSc), care este o formă insolubilă, rezistentă la PK și infecțioasă. PrPSc se propagă și se agregează urmând două mecanisme/modele larg acceptate, adică modelul asistat de șablon și modelul de polimerizare prin nucleare.
Un prion patogen acționează ca un șablon în modelul asistat de șablon și oferă o suprafață pentru transformarea unei proteine prion normale endogene în forma sa patogenă greșită [226]. În modelul de nucleare-polimerizare, monomericPrPSc se combină și formează un nucleu stabil, numit și sămânță. Aceste semințe continuă să recruteze PrPC și le convertesc în omologii lor patogeni [226].
Una dintre proprietățile remarcabile ale prionilor este că aceștia se pot plia greșit în diverse conformații, fiecare dând naștere profilurilor clinice, histologice și patologice distincte. Aceste agregate cu diferite conformații și comportament patologic sunt denumite „tulpini” [45,227]. Observațiile de pionierat asupra prezenței tulpinilor de prioni au provenit din studiul lui Pattison și Milson, 1961 [228], în care aceștia au produs experimental scrapie la capre și au observat manifestări clinice distincte ale bolii datorită diferitelor tulpini.
Într-un alt studiu, Fraserand Dickinson au reușit să distingă diferite tulpini de scrapie la modele de șoareci infectați, în funcție de amploarea leziunilor în diferite regiuni ale creierului [229]. Mai târziu, o multitudine de rapoarte au arătat existența tulpinilor de PrPSc [227,230–233] și metode de a le deosebi, cum ar fi digestia cu proteinază K (PK) [234,235], rezonanța paramagnetică a electronilor (EPR) și spectroscopia RMN [43].
Aceste conformații ale PrPSc variază în ceea ce privește diferitele tipuri de elemente de structură secundară, cum ar fi -helix, -torn, -turn, diferite pliuri structurale sau diferite împachetare [227,230,232,235,236]. De exemplu, prionproteina de la hamsterul sirian se repliază atât în structuri elicoidale, cât și în foi, precum și diferiți intermediari în soluție apoasă [236].
Acestea sunt nu numai structural, ci și funcțional distincte unele de altele [43] și au fost identificate în diferite tulburări prionice umane și animale [233,237]. În ciuda faptului că rezultă din agregarea aceleiași proteine prionice, bolile prionice diferă unele de altele în ceea ce privește debutul bolii/ perioada de incubație, progresia și leziunile histopatologice în creierul infectat [224,225]. Acest lucru a fost denumit în mod colectiv „fenomene ale tulpinii prionice” [45,46,238].
Unul dintre contributorii majori la această diversitate/variație de tulpină este capacitatea agenților/prioni infecțioși de a infecta anumite specii [44,239,240] și de a traversa „bariera speciilor”, generând astfel o varietate de tulpini cu caracteristici biochimice și patologice distinse. Un astfel de caz este vCJD (varianta bolii Creutzfeldt-Jakob), care rezultă din transmiterea interspecie a BSEprionului de la bovine la oameni [44,240], care este singurul caz cunoscut de transmitere a prionii non-umane la oameni.
De asemenea, s-a cunoscut că diferite tulpini de prioni coexistă între ele, așa cum se observă în cazul sCJD (boala sporadică Creutzfeldt-Jakob) [241,242], prezentând proprietăți biochimice distincte în diferite regiuni ale creierului. Tulpinile de prioni sunt, de asemenea, cunoscute că își extind perioada de incubație la co-infecția cu alte tulpini, arătând astfel un fenomen de „concurență”, așa cum s-a observat în diferite studii [243–245].
Toate caracteristicile menționate mai sus ale fenomenelor de tulpini prionice și potențialul de generare de noi tulpini de prioni au apărut nu numai ca o provocare științifică serioasă, ci și ca o amenințare pentru sănătatea publică generală.
Studii recente, totuși, au sugerat că această proprietate a tulpinii amiloizilor nu se limitează doar la prioni, ci și la alți amiloizi asociați cu diverse tulburări neurodegenerative, cum ar fi Alzheimer și Parkinson [19,246,247], [18,248]. Au fost furnizate diverse dovezi in vitro și in vivo. studii pentru a demonstra comportamentul de tulpină asemănător prionilor a -Syn, așa cum se discută mai jos.

4.2. -Tulpinile Syn Generate In Vitro
În ultimii câțiva ani au fost raportate dovezi tot mai mari ale tulpinilor de -Syn asemănătoare prionilor asociate cu variații clinice și patologice observate în sinucleinopatii [29–35,249].
Aceste tulpini au fost definite ca ansambluri conformaționale distincte și stabile ale unei singure proteine care se pot autoreplica și se pot propaga in vivo și rezultă în diferite fenotipuri de boală. Guo și colab. a descoperit două „tulpini” de fibrile preformate (puf-uri) de -Syn, prin fibrilizare denovo, denumită „tulpină A” și fibrilizare cu însămânțare repetitivă in vitro, denumită „tulpină B”.
Aceste două tulpini au prezentat conformații distincte și diferențe izbitoare în proteina tau de însămânțare încrucișată în culturile neuronale primare și in vivo [30]. Pe lângă documentarea dovezilor tulpinilor de fibrile -Syn pentru prima dată, aceste constatări au identificat, de asemenea, comportamentul de însămânțare încrucișată a -Syn. Mai târziu, mai multe grupuri au profitat de proprietatea cameleonică a lui -Syn [9] și au analizat numeroase condiții de creștere pentru a genera tulpini -Syn in vitro. În diferite condiții de creștere, au fost observate câteva stări conformaționale stabile și instabile ale proteinei [250].
Conformațiile, care nu sunt stabile termodinamic sau nu pot stabili interacțiuni intermoleculare stabile, nu pot crește în fibrile amiloide. Acestea sunt denumite stări incompetente de creștere (Figura 3). Pe de altă parte, stările competente de creștere ale -Syn pot crește și forma diferite fibrile în funcție de condițiile de creștere (Figura 3).
Fibrilele rezultate în diferite condiții de asamblare nu au proprietăți biochimice și biofizice diferite, cum ar fi rezistența la proteaze, citotoxicitatea, capacitatea de însămânțare etc. [29–32,34–36,51,53], dar își imprimă și arhitectura fibrilelor fiice în funcție starea de creștere și natura semințelor (Figura 3).
Bousset et al. a generat într-adevăr două tulpini -Syn diferite din punct de vedere structural și funcțional, denumite „fibrile” și „panglici”, folosind diferite concentrații de sare fiziologică [29]. Fibrile au provocat mai multă citotoxicitate, în timp ce panglicile s-au dovedit a fi mai eficiente în inducerea incluziunilor -Syn in vivo [33]. Diferențe similare au fost obținute cu tulpinile generate de Suzuki și colab. [51], unde o tulpină a provocat acumularea de agregate abundente fosforilate și ubiquitinate -Syn în neuronii de cultură și șoarecii datorită capacității sale de a interacționa cu complexele proteazomale, în timp ce cealaltă tulpină nu a reușit să facă acest lucru [51].
În zilele noastre, diferitele condiții experimentale au devenit mai degrabă o strategie comună pentru a genera tulpini in vitro. În cazurile în care criteriile care trebuie numite „tulpină”, adică ar trebui să fie o variantă structurală a agregatelor de proteine, să prezinte capacitatea de a se autopropaga și de a transmite în serie boala în generațiile următoare și de a provoca variații clinice și fenotipice ale bolii, nu sunt complet îndeplinite, ar fi mai potrivit să le numim fibrilsas „polimorfi”.
Acești polimorfi pot prezenta diferențe izbitoare în morfologia și structura lor [28,56,251], ratele de nucleare [252], capacitatea de însămânțare și de legare la membrană în celule [36] etc. Cu toate acestea, ca o consecință funcțională a acestor variații structurale în polimorfe, ei pot sau pot nu au ca rezultat subtipuri clinice distincte de boli. Există, de asemenea, cazuri de polimorfism intraeșantion, care pot apărea indiferent dacă fibrilele sunt generate in vitro [39,57,253–256] sau derivate din extracte din creier [40,257,258].
În timp ce acestea pot avea anumite caracteristici comune, cum ar fi un pliu monomer similar sau o structură comună, ele arată, de asemenea, diferențe marcate în morfologie, aranjamentul catenelor sau proprietăți biochimice [57,256]. Astfel, diferite condiții de asamblare pot genera ansambluri fibrilare distincte structural și funcțional, care fie se pot propaga ca o tulpină -Syn unică, fie pot forma pur și simplu polimorfi.

Mai multe rapoarte au susținut prezența agregatelor -Syn în tractul gastrointestinal [259–263] și un rol cheie al nervului vagal în răspândirea acestor agregate din intestin la creier [74,76,192,264,265]. Recent, s-a demonstrat că E. coli care exprimă curli promovează patologia -Syn în intestin și creierul șoarecilor care supraexprimă -Syn uman [78]. Expunerea la amiloizi microbieni poate induce polimorfism.
În schimb, ar fi interesant să ne întrebăm dacă diferite forme de -Syn (polimorfe) provin din intestin, se răspândesc în regiunile creierului prin transport vagal retrograd și provoacă patologie într-o manieră specifică tulpinii. În acest context, s-au observat diferențe structurale și funcționale între fibrilele -Syn formate în prezența și absența lipopolizaharidei de endotoxină bacteriană (LPS) [31].
Se știe că LPS modulează agregarea -Syn prin stabilizarea intermediarilor -helical formați în timpul căii sale de agregare, rezultând fibrile cu citotoxicitate variabilă și comportament de internalizare alterat [266]. acetilarea, nitrarea etc., care sunt direct asociate cu agregarea și citotoxicitatea acesteia [94,115,267,268].
Deoarece pS129 este cea mai comună PTM și forma principală de -Syn în corpurile de incluziune, poate provoca formarea de tulpini în -Synin vivo. Ma și colab. a arătat că fosforilarea la Ser129 permite proteinei să formeze o tulpină distinctă care diferă structural cu citotoxicitate mai mare și proprietăți de propagare diferite in vitro și în celule în comparație cu omologul de tip sălbatic (fără fosforilare) [269].
Nu numai fosforilarea, ci și acetilarea N-terminală poate transmite polimorfismul fibrilei [267], sugerând că chiar și o ușoară modificare a secvenței de aminoacizi -Syn poate avea un impact semnificativ asupra structurii fibrilei. Alterarea structurii fibrilelor poate influența și mai mult propagarea fibrilelor in vivo prin țintirea selectivă a unor tipuri de celule și populații celulare distincte din creier [32].
Aceste diferențe specifice tulpinii sunt apoi păstrate fidel de-a lungul generațiilor [28,29,52] și duc la diferențe clinice în ceea ce privește debutul bolii, boli neurologice, profilul leziunii etc. [32]
În general, aceste studii sugerează că într-un mediu complex și aglomerat, cum ar fi cel al celulei, modificări subtile de mediu și celulare, prezența cofactorilor sau a altor proteine și modificările secvenței primare a proteinei pot duce la formarea de polimorfi sau tulpini diferite. , ducând la rezultate diferite ale bolii.

For more information:1950477648nn@gmail.com


